Beiträge von Schwammer-Dieter

    Danke Pablo für die ausführliche Antwort,
    das schau ich mir mal genauer an und melde mich noch dazu.
    Erdritterlinge sind für mich ein total neues Thema - spannend natürlich ohne Ende.
    Ich kämpfe momentan damit die Funde der letzten Wochen zu verarbeiten.
    Geile Funde - folgt alles bald. Und was Matthias momentan so findet - das ist der Oberabschuss....
    Melden uns bald...
    Dieter


    PS: ( Stephan) Wie geht es eigentlich mit dem Ritterling-Sequenzierungs-Projekt vorwärts?

    [font="Arial"]Berichte vom Juni 2016

    Hallo Pilzfreunde,
    hier 2 Berichte vom Juni 2016.
    Viel Spaß damit.

    [/font]


    [font="Arial"]04.06.2016: 2 Arten im Garten
    Zu Besuch bei bekannten auf einem Spaziergang fanden sich 2 Arten die ich schnell fotografiert hatte.
    Viel Spaß damit...

    [/font]
    [font="Arial"]Fundnummer: 2016-06-04-1625

    Makrodaten:
    Fundort:
    ca. 550 müNN. ca. N50, O12, auf Erde (nicht Holz), unter Weißdorn
    Fundzeit:
    04.06.2016
    Wuchsform: gesellig zu hunderten und teilweise büschelig
    Hutform:
    jung: halbkugelig, alt stumpfkegelig
    Huthaut: jung: orange-ocker, befasert, alt: beige, kahl
    Hygrophanität: ja stark
    Hutrand: mit stärkerem Behang
    Lamellen: graulich creme, mit Zwischenlamellen, mit wenigen Y-Gabeln
    Lamellenschneiden: ohne Besonderheiten
    Lamellen-Stielübergang:
    gerade angewachsen
    Fleisch: zerbrechlich
    Stiel: creme, befasert und bereift, Spitze rinnig bereift, hohl
    Stielbasis:
    rund, nicht wurzelnd
    Größe:
    Hutdurchmesser ca. 2-5 cm, Stiellänge 3-8 cm, Stieldurchmesser ca. 2-6 mm
    Sporenpulverfarbe: schwarz-violett
    Geruch: neutral, zerrieben: nicht getestet

    [/font] [font="Arial"]Geschmack: nicht probiert
    [/font]
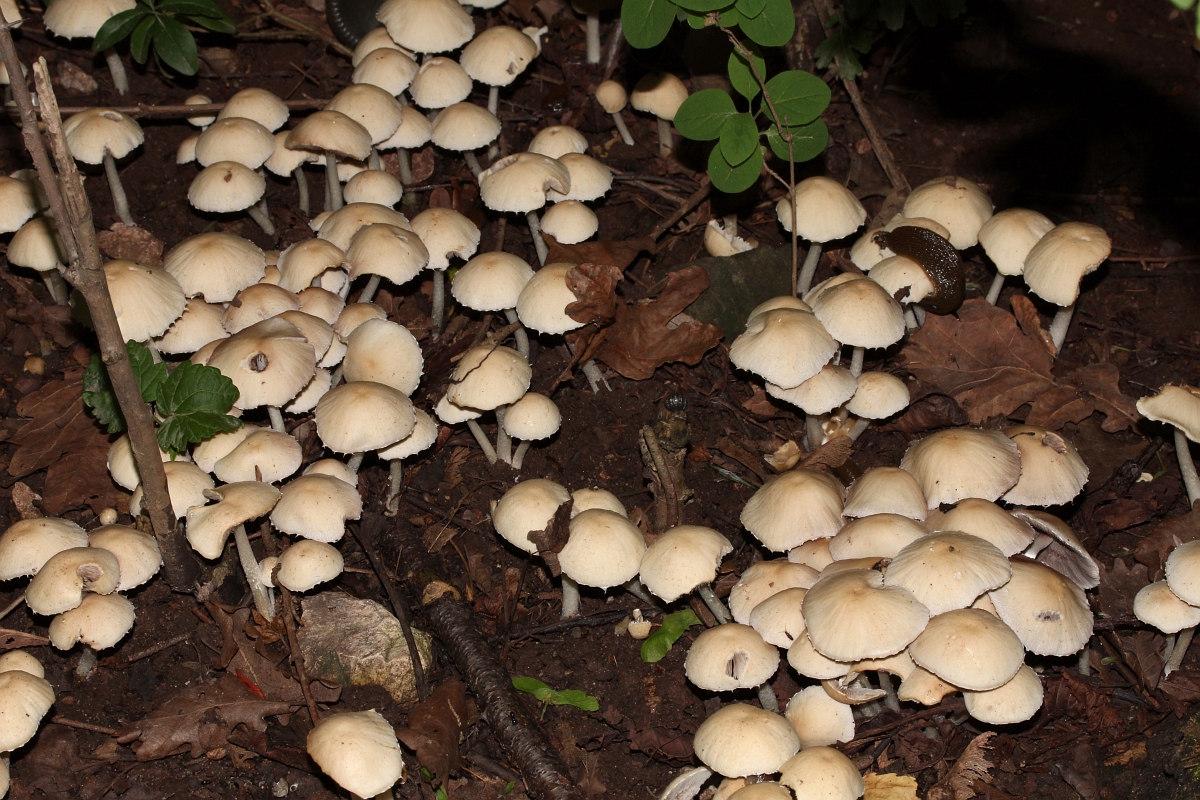
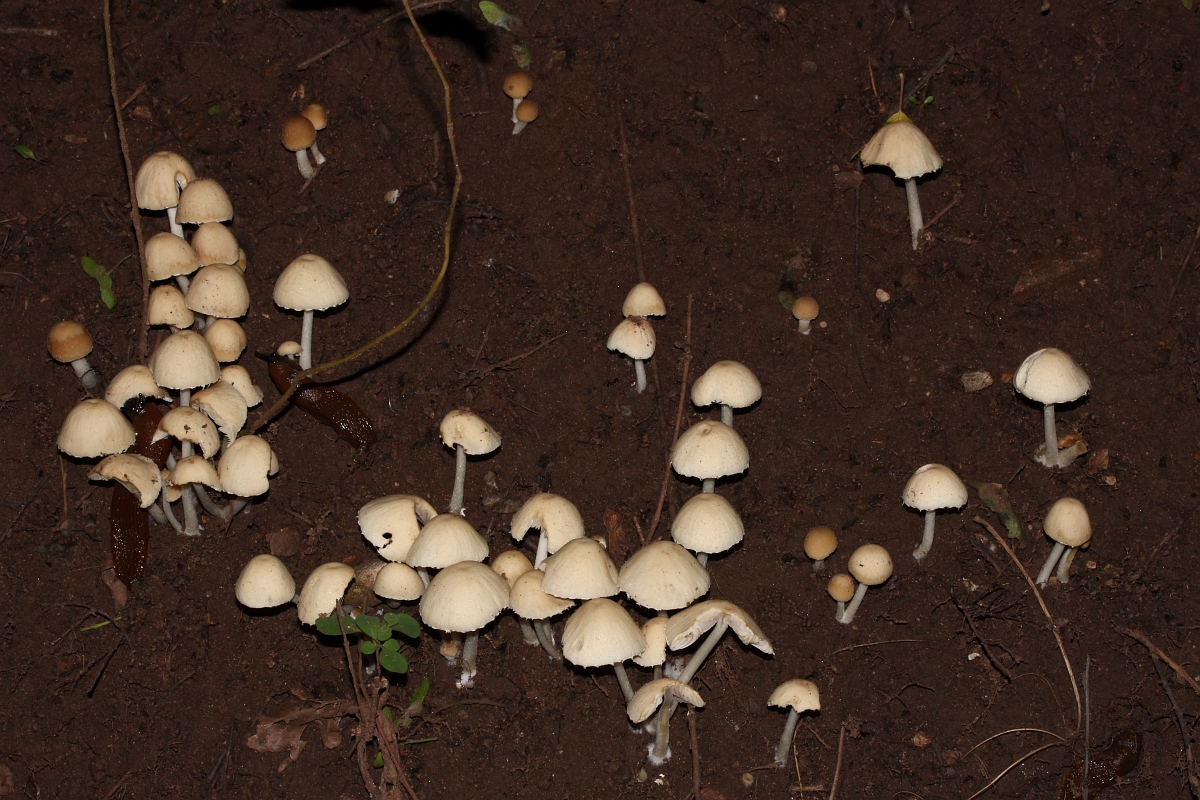
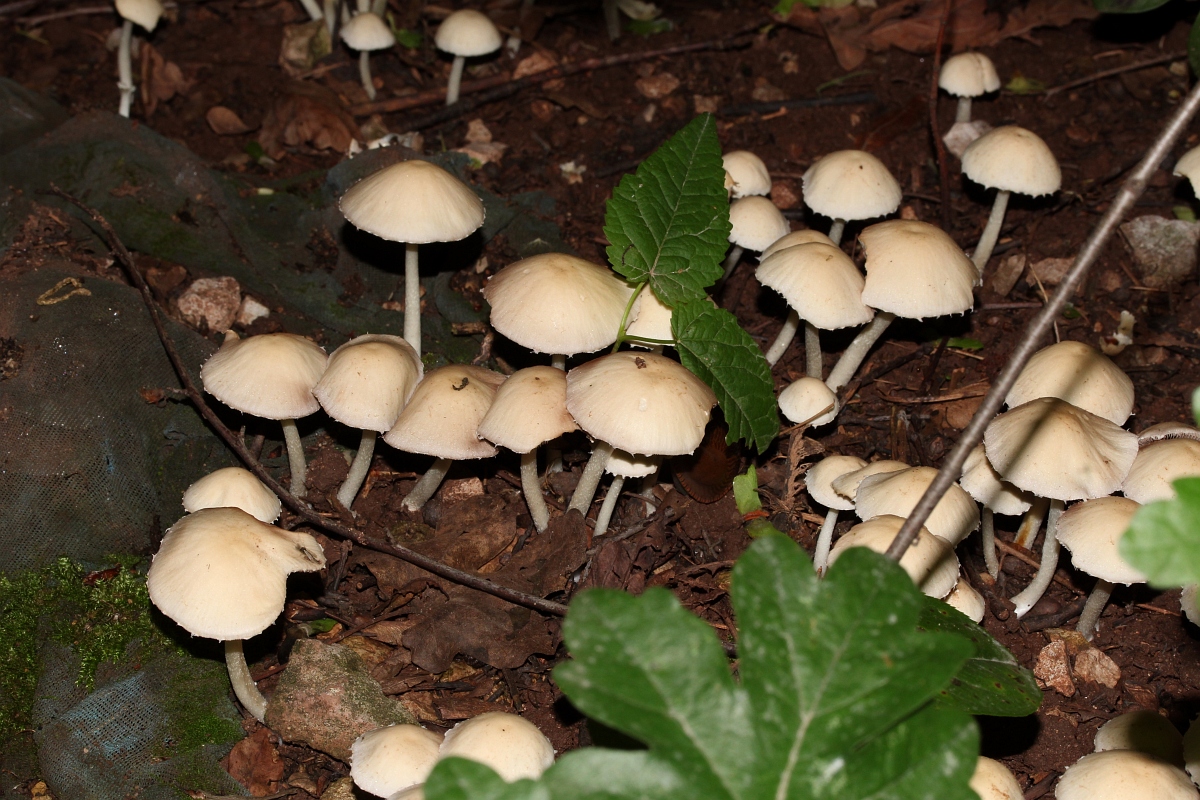
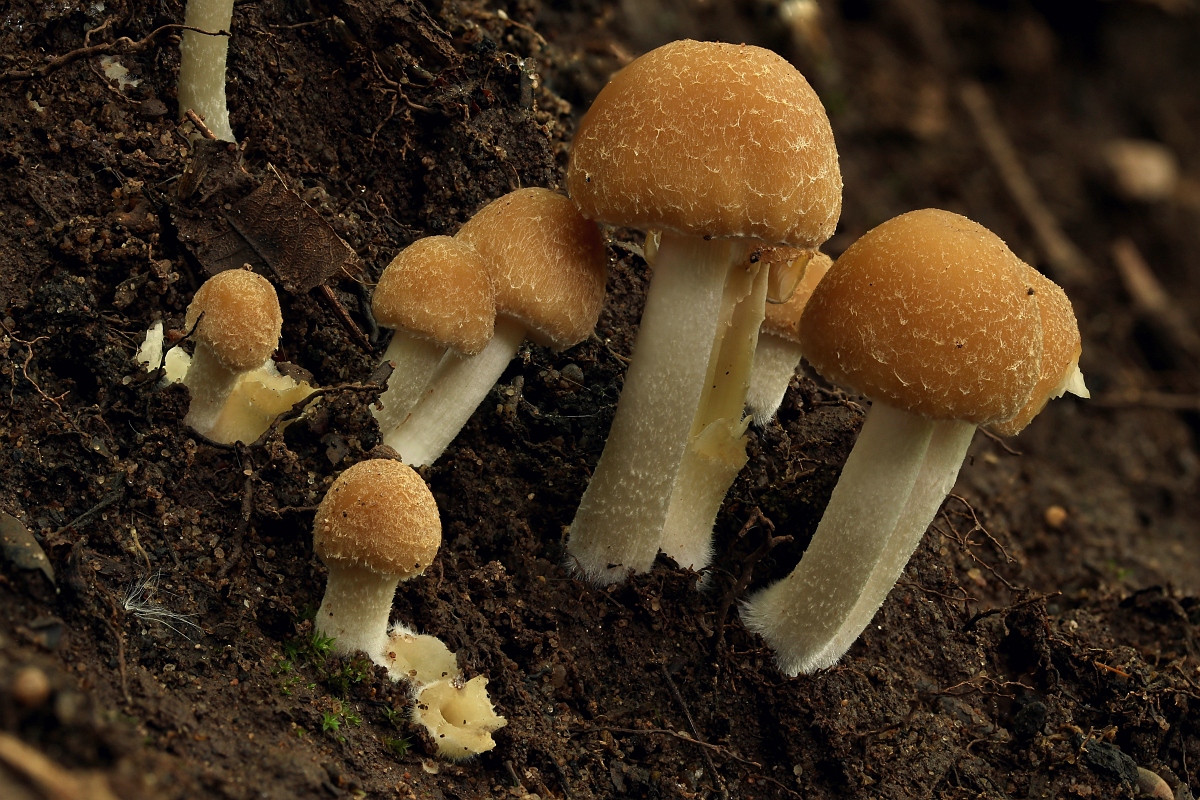
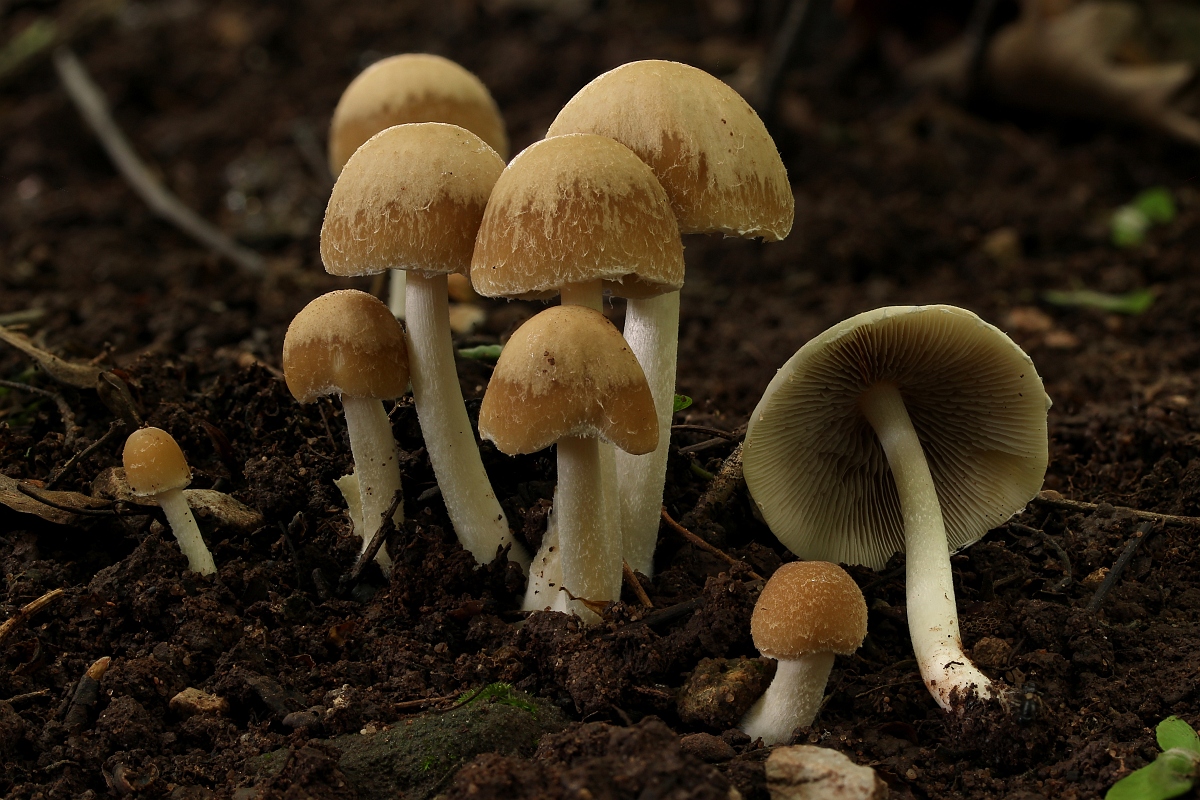
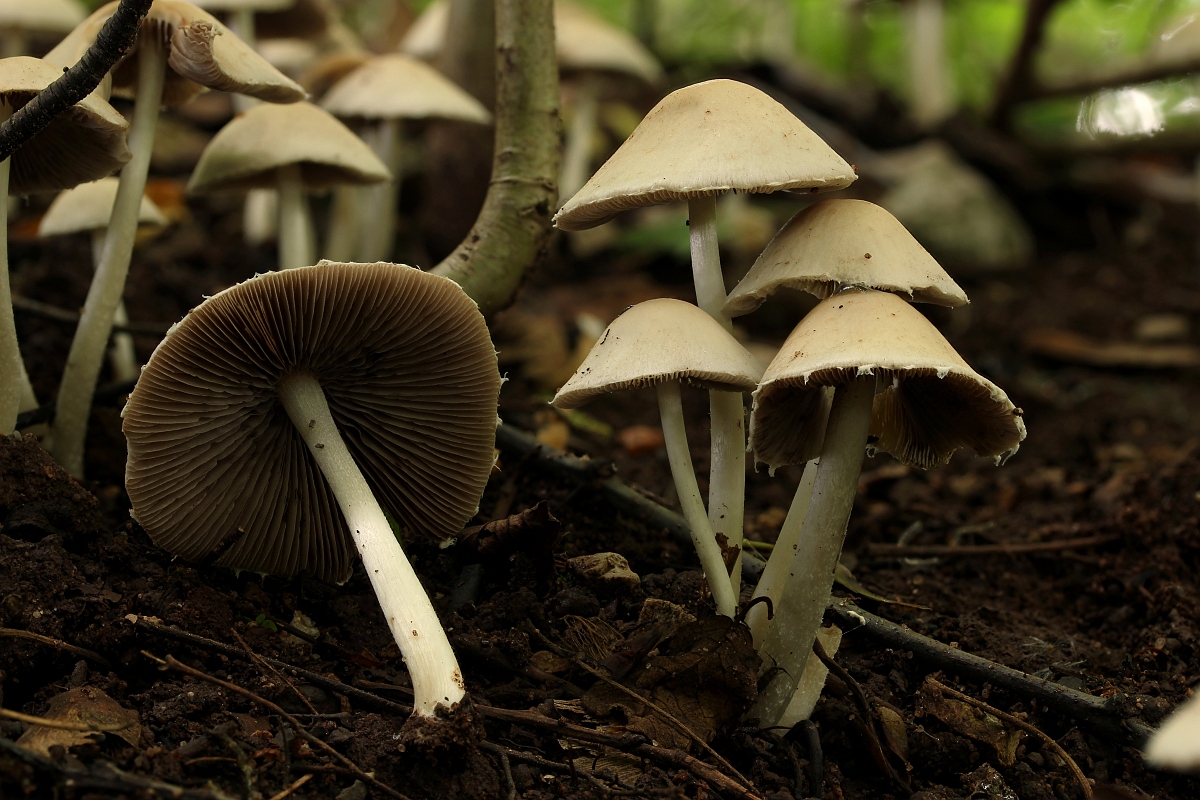
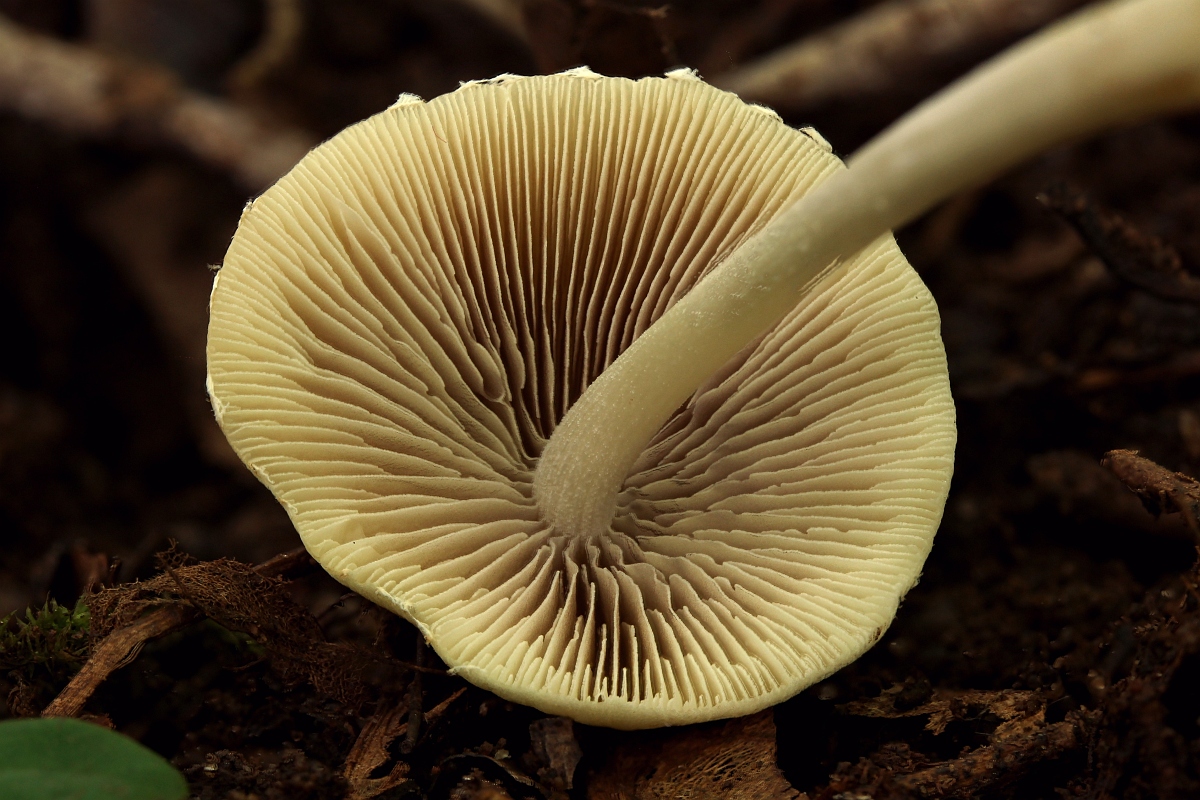
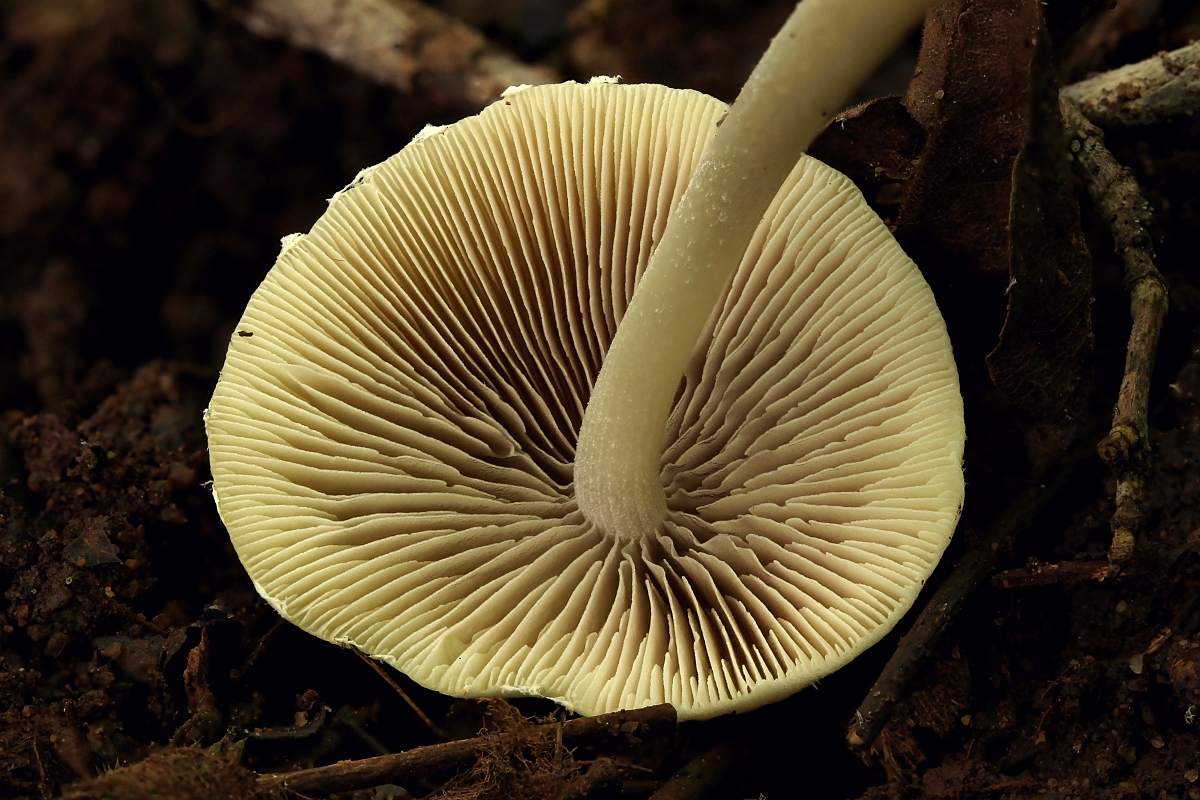
    [font="Arial"]Das ist der Behangene Faserling (Psathyrella candolleana):
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Fundnummer: 2016-06-04-1929
    [/font]
    [font="Arial"]Ein schwierigerer Kandidat:

    Morphologische Daten:
    [/font]
    [font="Arial"]Fundort: ca. 550 müNN. ca. N50, O12, auf Wiese neben Kirsche
    Fundzeit:
    04.06.2016
    Wuchsform: paarweise
    Hutform:
    konvex mit leichtem Buckel, alt flach
    Huthaut: rotbraun, Lamellen am Rand etwas durchscheinend
    Hygrophanität: ja stark
    Hutrand: behangen
    Lamellen: beige
    Lamellenschneiden:
    ohne Besonderheiten
    Lamellen-
    Stielübergang:
    gerade angewachsen
    Fleisch:
    ohne Besonderheiten
    [/font]
    [font="Arial"]Stiel: rotbraun, minimal befasert
    Stielbasis:
    normal
    Größe:
    Hutdurchmesser ca. 0,5 cm, Stiellänge ca. 2 cm, Stieldurchmesser ca. 1 mm
    Sporenpulverfarbe: nicht getestet
    Geruch: neutral, etwas pilzig, zerrieben fruchtig
    Geschmack: nicht probiert

    Mikroskopische Daten:

    [/font]
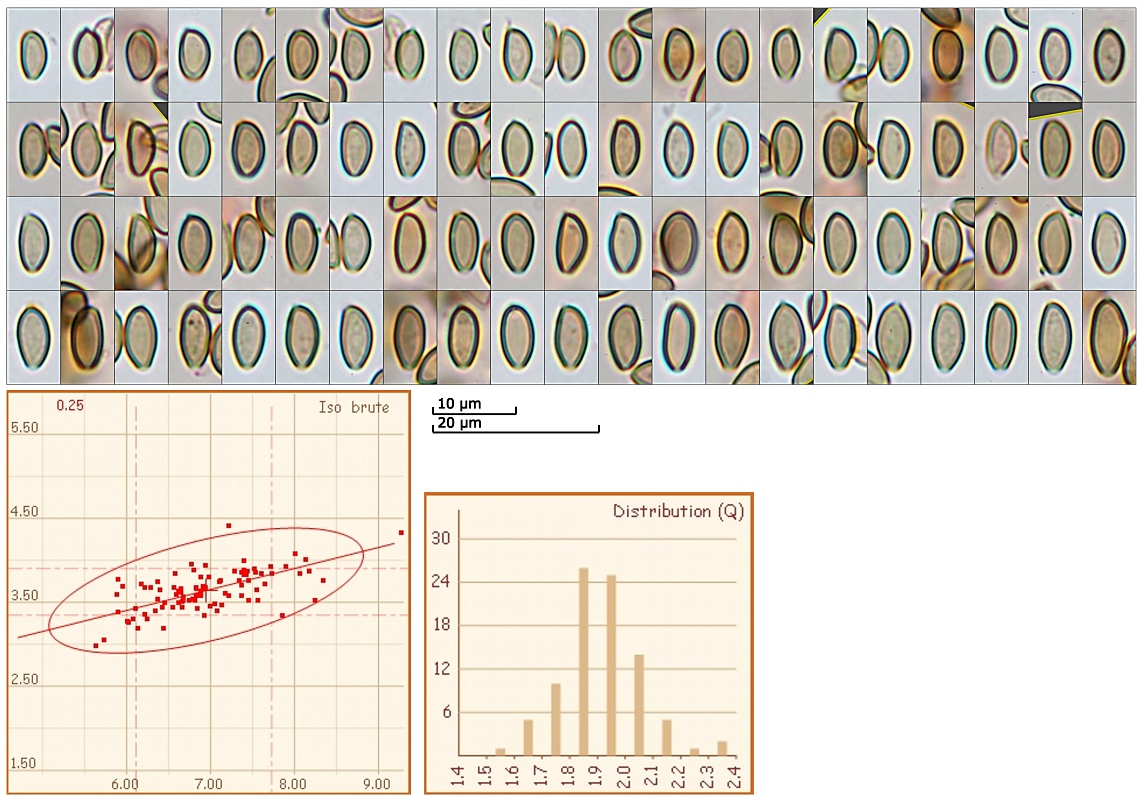
    [font="Arial"]Sporen:
    glatt, meistens amygdaloid (mandelförmig), breiter Keimporus, teilweise am Keimposus abgeflacht, dickwandig
    Achtung: Messung erfolgte nicht im Sporenabwurf sondern am Lamellenstück.
    (5.6) 6.1 - 7.7 (9.3) x (3) 3.3 - 3.9 (4.4) µm
    Q = (1.6) 1.7 - 2.1 (2.3) ; N = 89
    V = (26) 37 - 62 (91) µm ³
    Me = 6.9 x 3.6 µm ; Qe = 1.9 ; Ve = 49 µm ³

    Keimporus:
    (0.4) 0.5 - 0.9 (1) µm
    N = 33
    Me = 0.7 µm
    [/font]
    [font="Arial"]Lamellen-Hyphen:
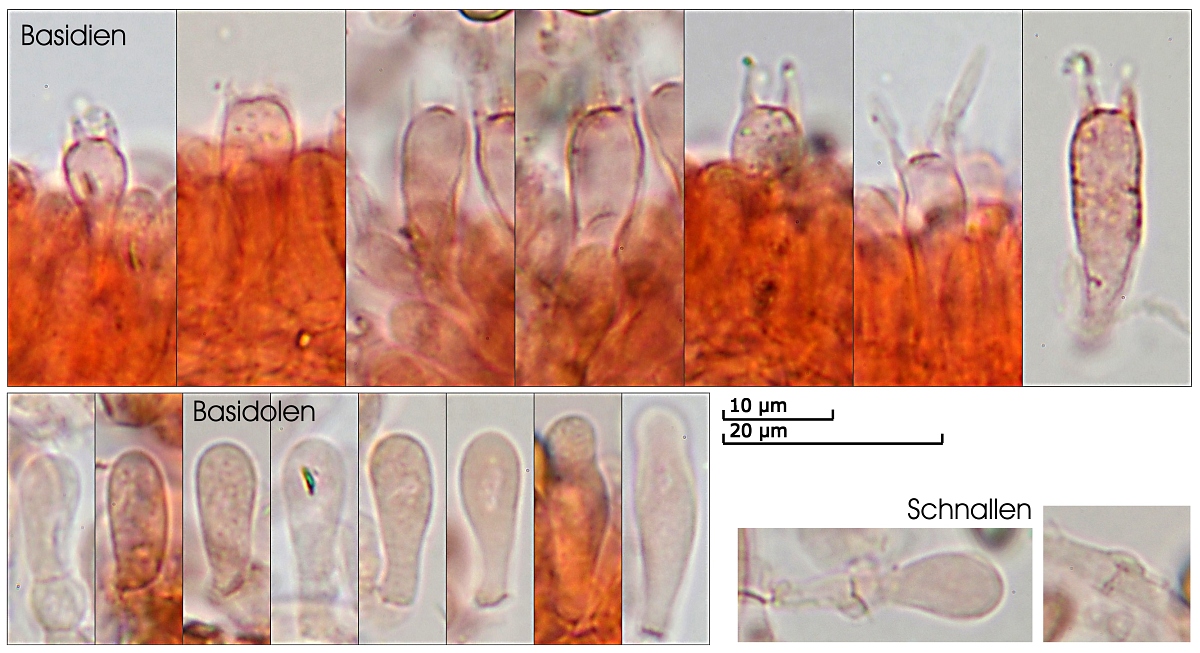
    Schnallen vorhanden (sehr, sehr wenige)

    [/font]
    [font="Arial"]Basidien:
    4-sporig, Schnallen vorhanden (sehr, sehr wenige)
    (13.9) 15.8 - 19.6 (22) x (5.5) 5.7 - 6.7 (6.9) µm
    Q = (2.3) 2.5 - 3.4 (3.5) ; N = 7
    Me = 17.9 x 6.2 µm ; Qe = 2.9


    Basidolen:
    Schnallen vorhanden (sehr, sehr wenige)
    (11.4) 12.4 - 18.6 (20.8) x (5) 5.3 - 6 µm
    Q = (2) 2.2 - 3.2 (3.5) ; N = 11
    Me = 15.1 x 5.6 µm ; Qe = 2.7
    [/font]
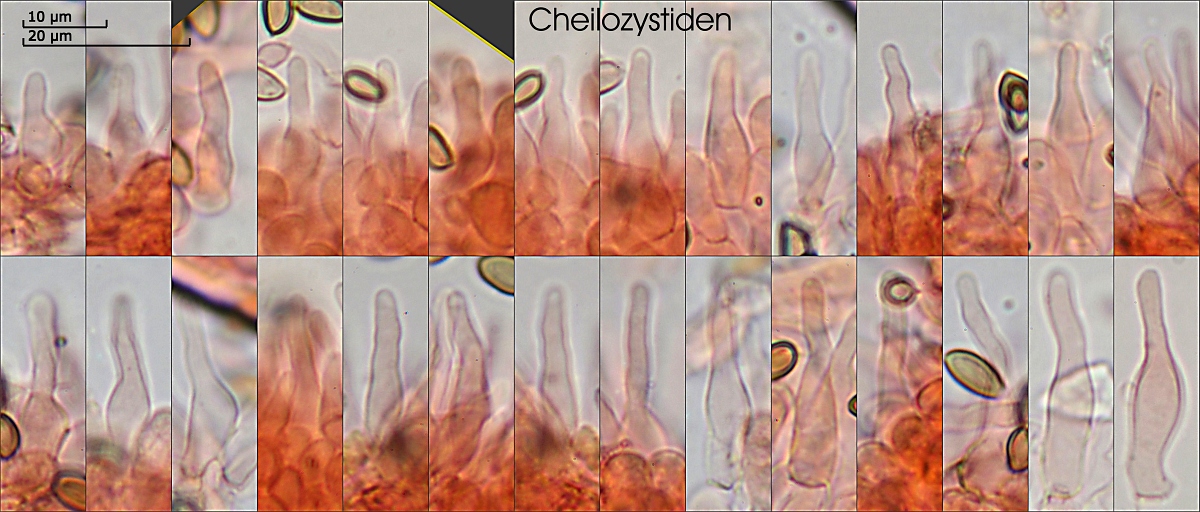
    [font="Arial"]Cheilozystiden:
    sehr zahlreich, büschelig, lageniform (flaschenförmig) –“ an der Basis ungewöhnlich breit,
    (13.6) 16.3 - 26.9 (27.2) x (3.8) 4.6 - 6.1 (6.9) µm
    Q = (2.6) 3.4 - 4.7 (5.2) ; N = 28
    Me = 20.9 x 5.3 µm ; Qe = 4


    Pleurozystiden:
    fehlend

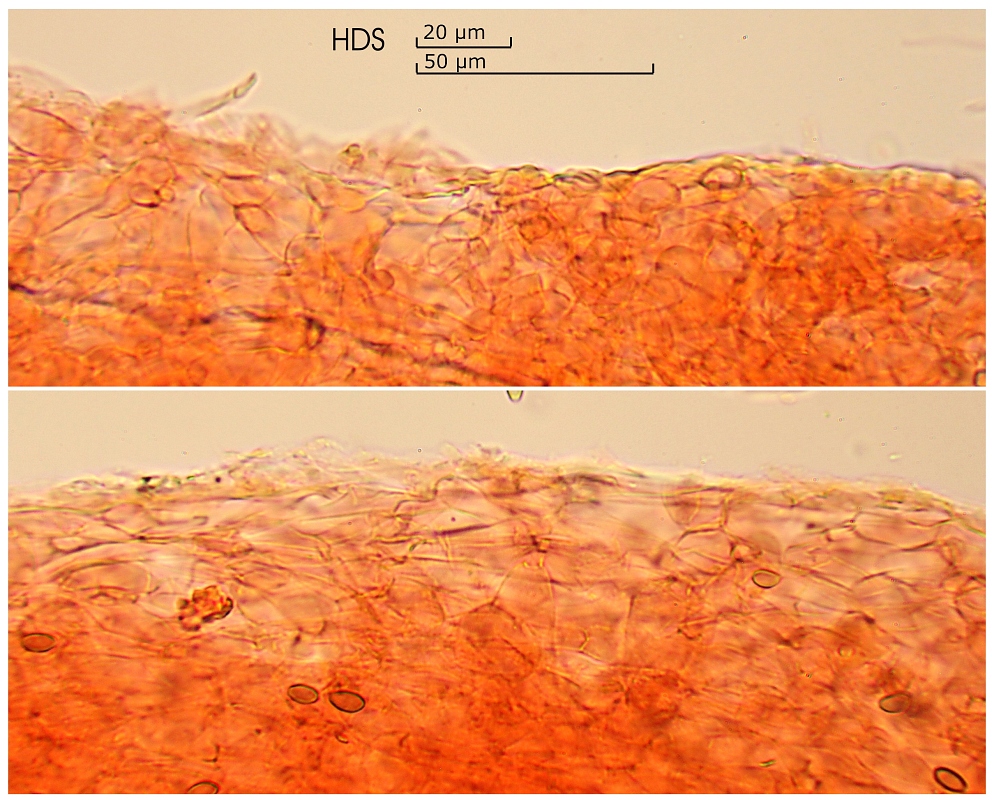
    HDS:
    teilweise unter gelatinöser Schicht, dicht verschlungene Zellen ohne Besonderheiten, keine Schnallen
    [/font]
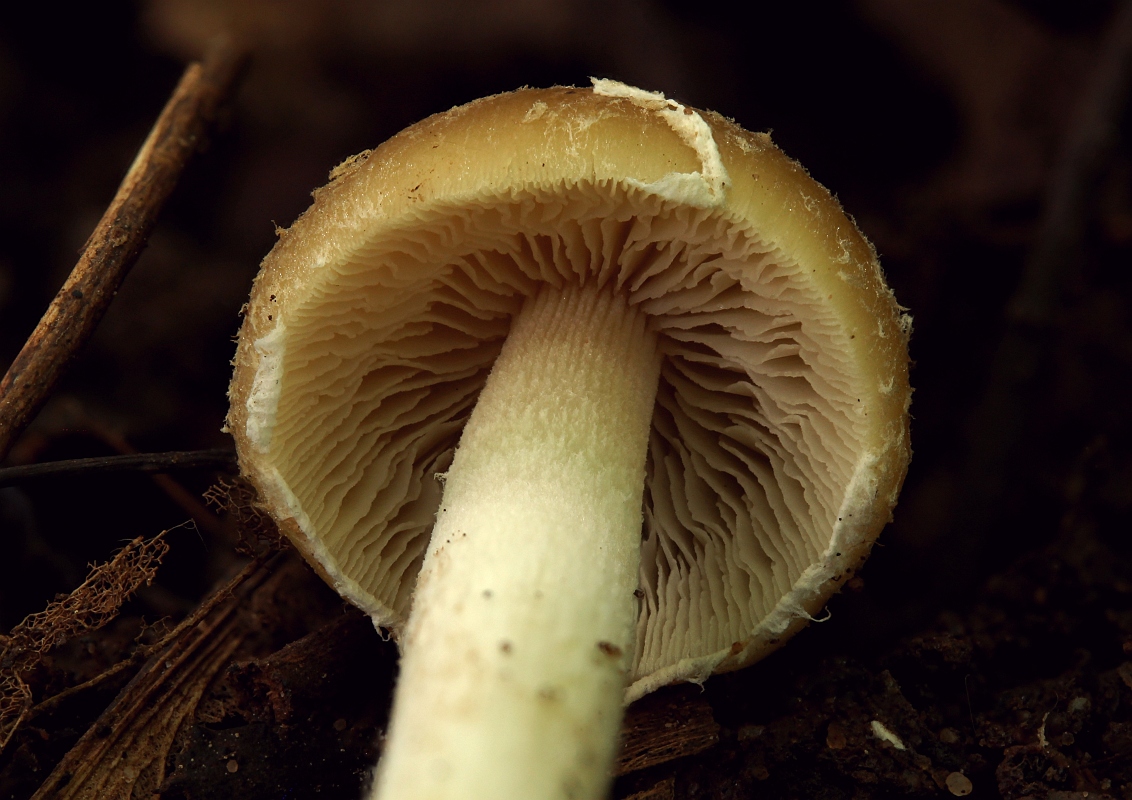
    [font="Arial"]Schnitzling (Tubaria spec.) kann ich schon mal ausschließen - da passt nichts.
    Schlüsselt man mit FN mit dem Galerina-Schlüssel landet man bei Phaeogalera spec. --> das kann nicht sein.
    Schlüsselt man an Phaeogalera vorbei - nach Galerina einfach weiter, landet man in einer Sackgasse.
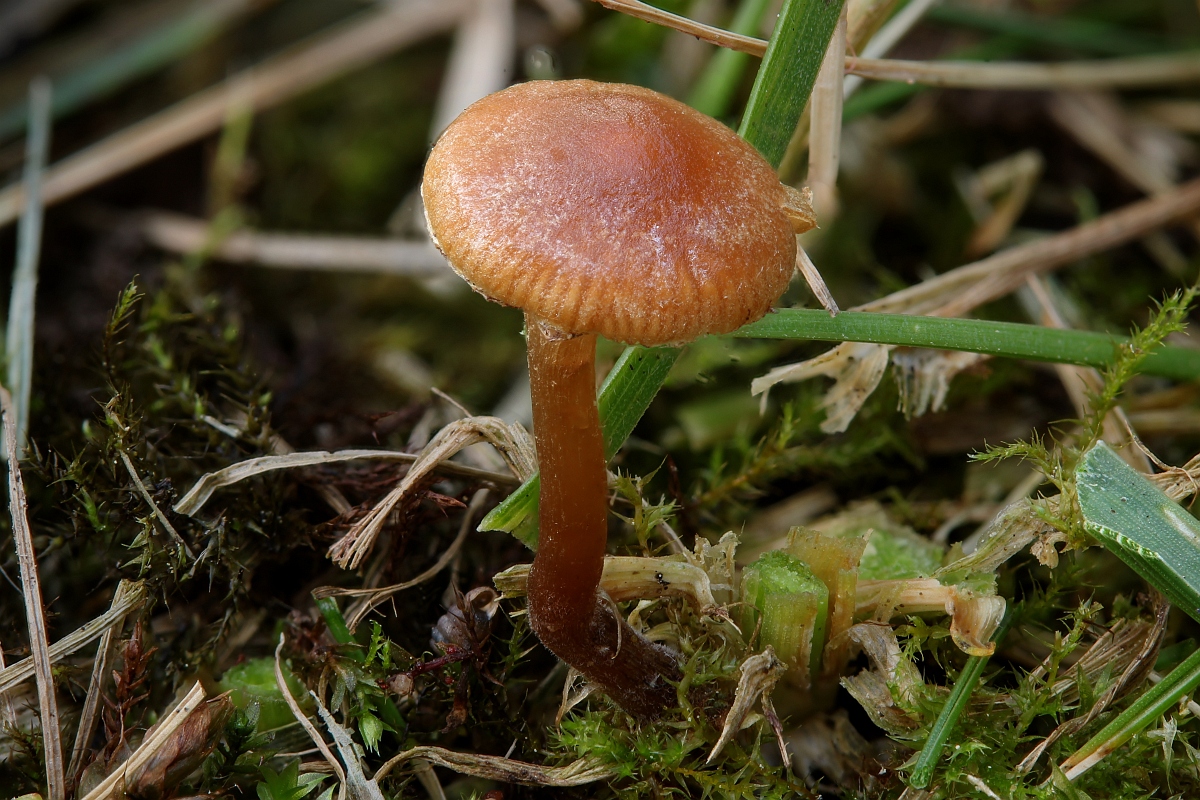
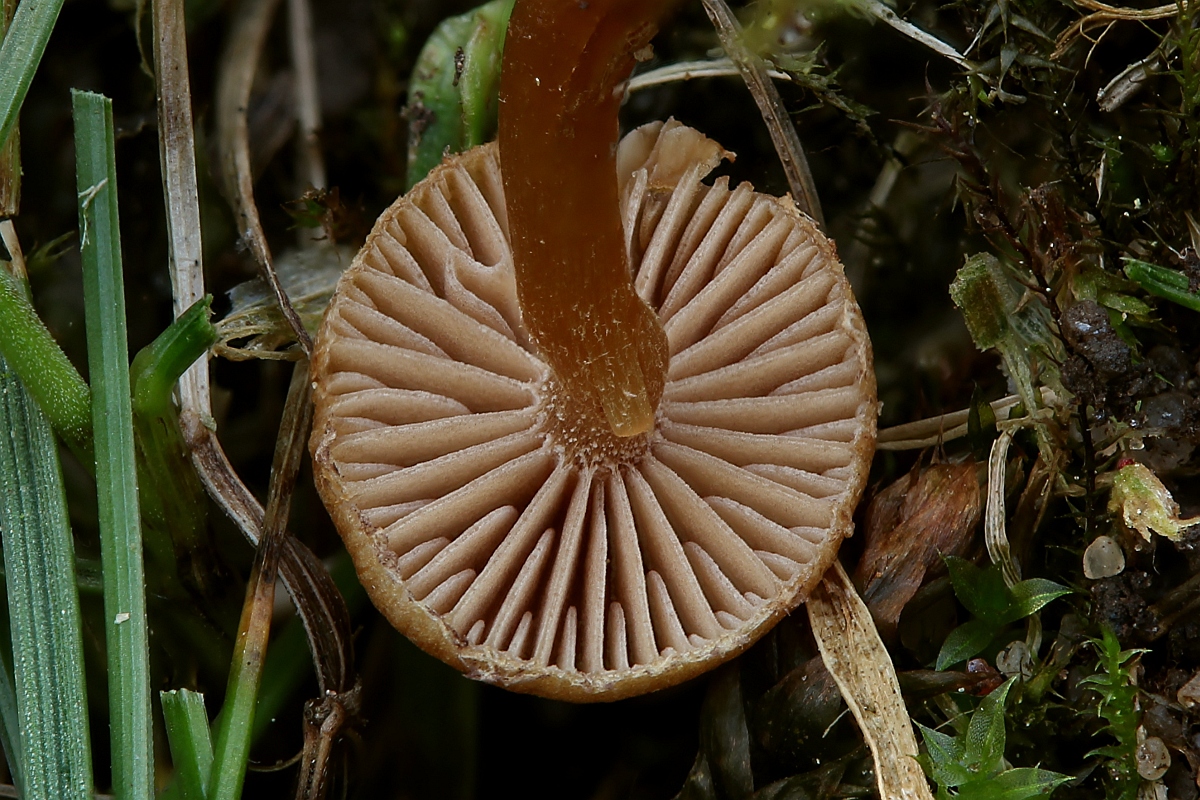
    Also vielleicht Deconica? Ja, so war es dann auch.
    Schlüsselt man nach Deconica (in FN) landet man beim Trockenen Kahlkopf (Deconica montana) welcher einwandfrei passt:
    [/font]
    [font="Arial"]
    [/font]
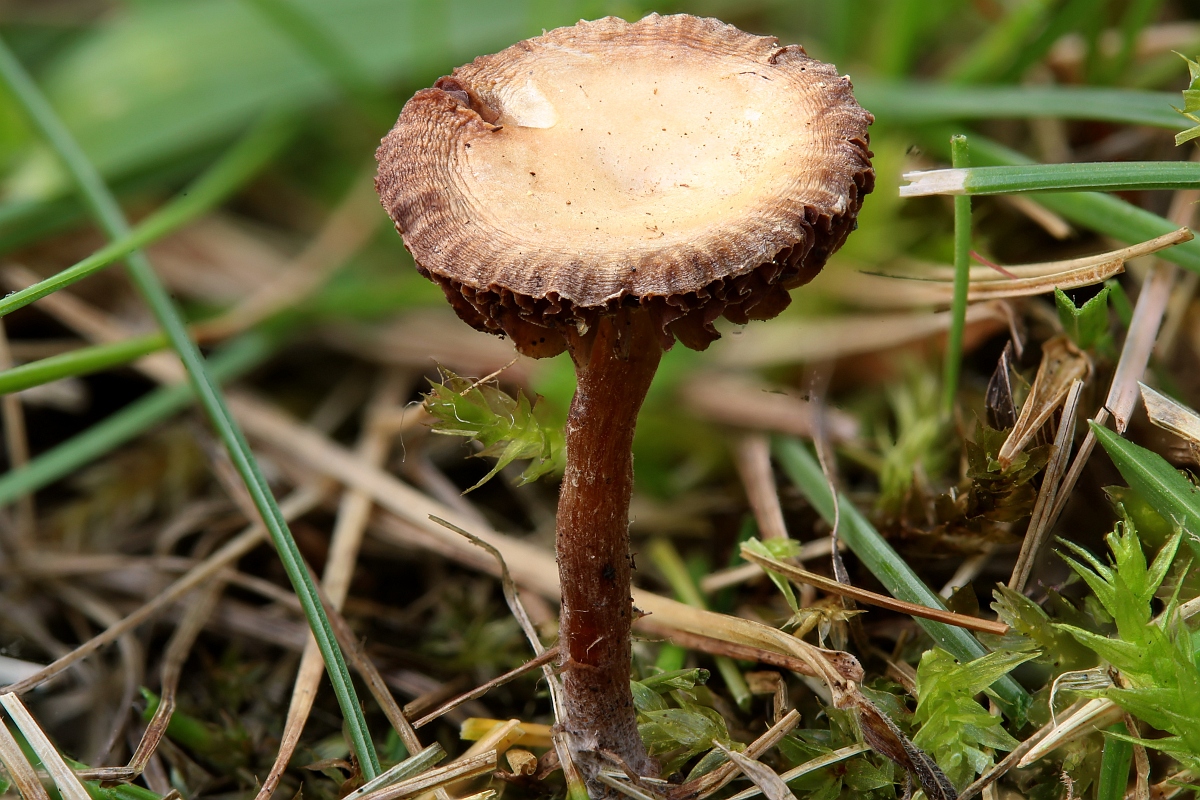
    [font="Arial"]Altes Exemplar:
    [/font]
    [font="Arial"]05.06.2016: Erdritterlinge und auch andere
    [/font]
    [font="Arial"]
    Hier einige Funde die ich nebenbei - nicht im Wald sondern an Straßenrändern machte.
    Darunter 3 verschiedene Erdritterlinge die ich mir diesmal genauer ansah.

    [/font]
    [font="Arial"]
    Fundnummer: 2016-06-05-1320

    [/font]
    [font="Arial"]Morphologische Daten:
    [/font]
    [font="Arial"]Fundort: ca. 550 müNN. ca. N50, O12, auf Rasen
    Fundzeit: 05.06.2015
    Wuchsform: einzeln
    Hutform:
    stumpfkegelig
    Huthaut: grau, Lamellen durchscheinend
    Hygrophanität: wahrscheinlich ja
    Hutrand: gezahnt
    Lamellen: weiß, mit angedeuteten Queradern, mit Zwischenlamellen
    Lamellenschneiden:
    ohne Besonderheiten

    Lamellen- Stielübergang:
    ausgebuchtet angewachsen und minimal herablaufend
    Fleisch: zerbrechlich
    Stiel: oben hellgrau, nach unten hin braungrau werdend, hohl, stark bereift
    Stielbasis:
    normal
    Größe:
    Hutdurchmesser ca. 0,6 cm; Stiellänge ca. 6 cm, Stieldurchmesser ca. 1 mm
    Sporenpulverfarbe: nicht getestet
    Geruch: nitrös
    Geschmack: nicht probiert

    [/font]
    [font="Arial"]Mikroskopische Daten:
    [/font]
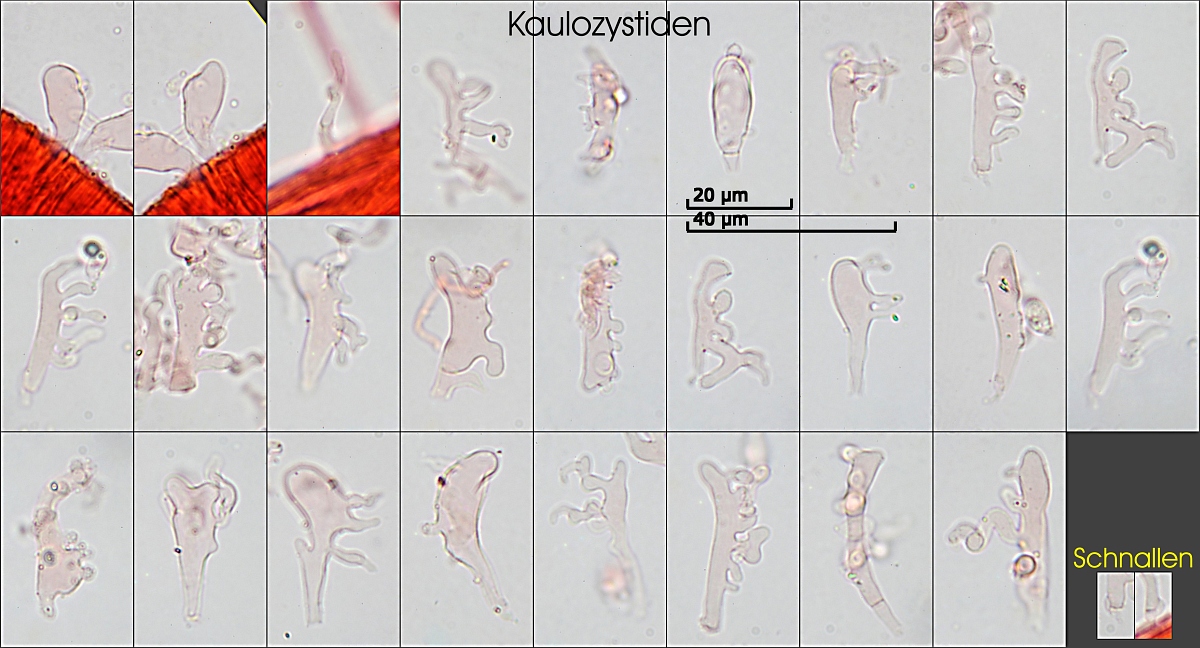
    [font="Arial"]Kaulozystiden:
    sehr häufig, manchmal etwas inkrustiert, koralloid bis igelig, Schnallen sehr selten
    [/font]
    [font="Arial"]
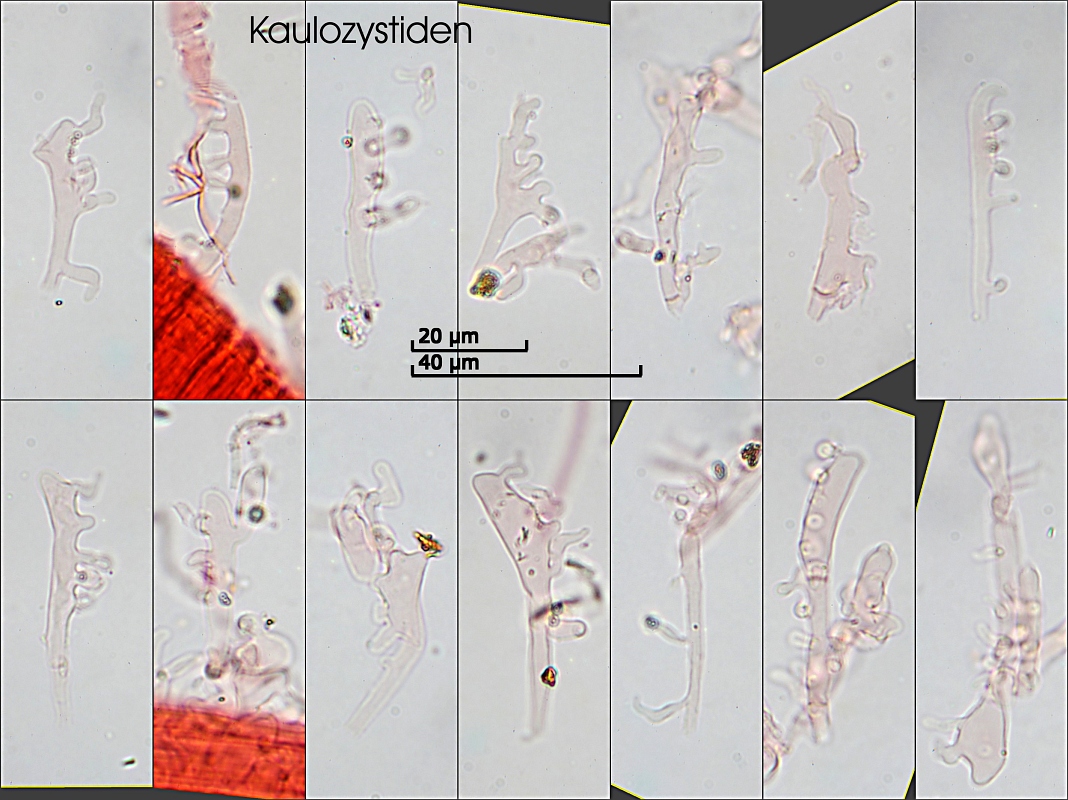
    Hier war ich nicht sicher ob das eine Mycena leptocephala [wir nenne die "Lepti"] sein kann, denn Robich zeigt hier etwas andere Kaulozystiden. Ich musste mit dem Matthias Rücksprache halten und er erklärte mir:
    "das geht problemlos als Lepti durch. Solche Verzweigungen an den Kaulos scheinen eher die Regel als die Ausnahme zu sein, wobei ich auch schon einige hatte, die kaum Verzweigungen hatten, also exakt wie die meisten Zystiden bei Robich. Klar ist jedenfalls, dass die sehr variable Art durchaus noch gesplittet werden wird/könnte, wenn da mal eine großangelegte Studie kommt. Aber für den Moment ist sowas ne ganz normale Lepti, wohl wissend, dass das ne Sammelart ist.
    Dass Schnallen mal selten sind oder fehlen ist ebenso normal, wie Aronsen auch auf seiner Seite schreibt."


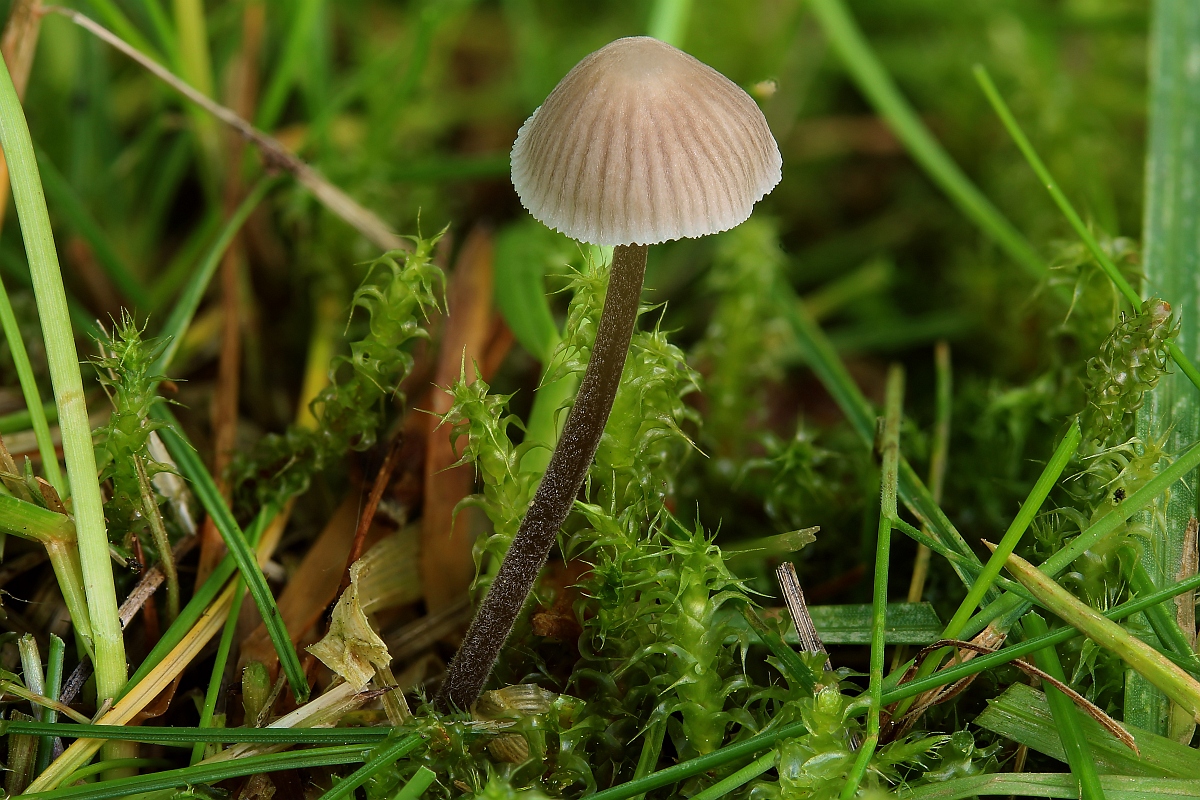
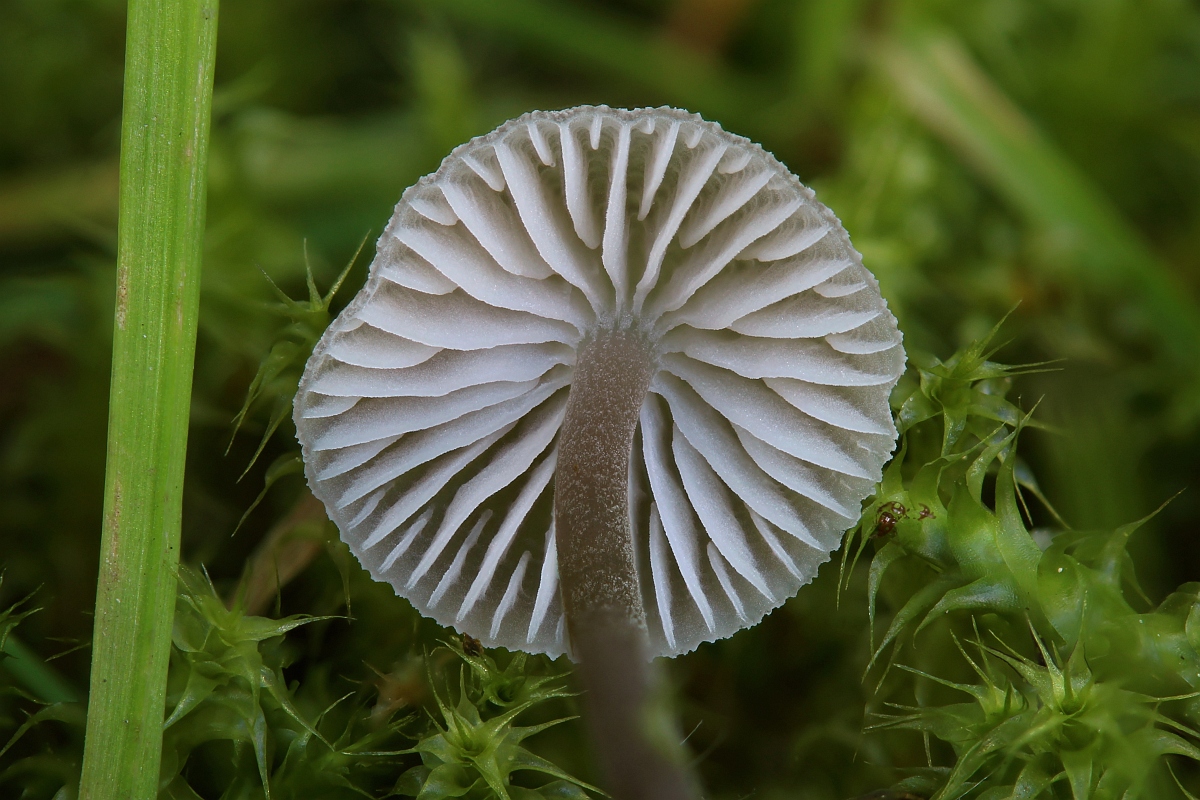
    OK, damit ist es der Graue Nitrathelmling (Mycena leptocephala):
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Fundnummer: 2016-06-05-1332
    [/font]
    [font="Arial"]Das ist der gleiche wie Fundnummer 2015-12-05-1533 - wer sich noch daran erinnert (Genau gleicher Standort)
    [/font]
    [font="Arial"]Fundort: ca. 550 müNN. ca. N50, O12, auf Rasen, 6 Meter weit weg von Birke, Linde, kleineren Weiden
    Fundzeit:
    05.06.2016
    Wuchsform: gesellig
    Hutform:
    jung: glockig mit Spitzbuckel, alt: ausgebreitet mit Spitzbuckel
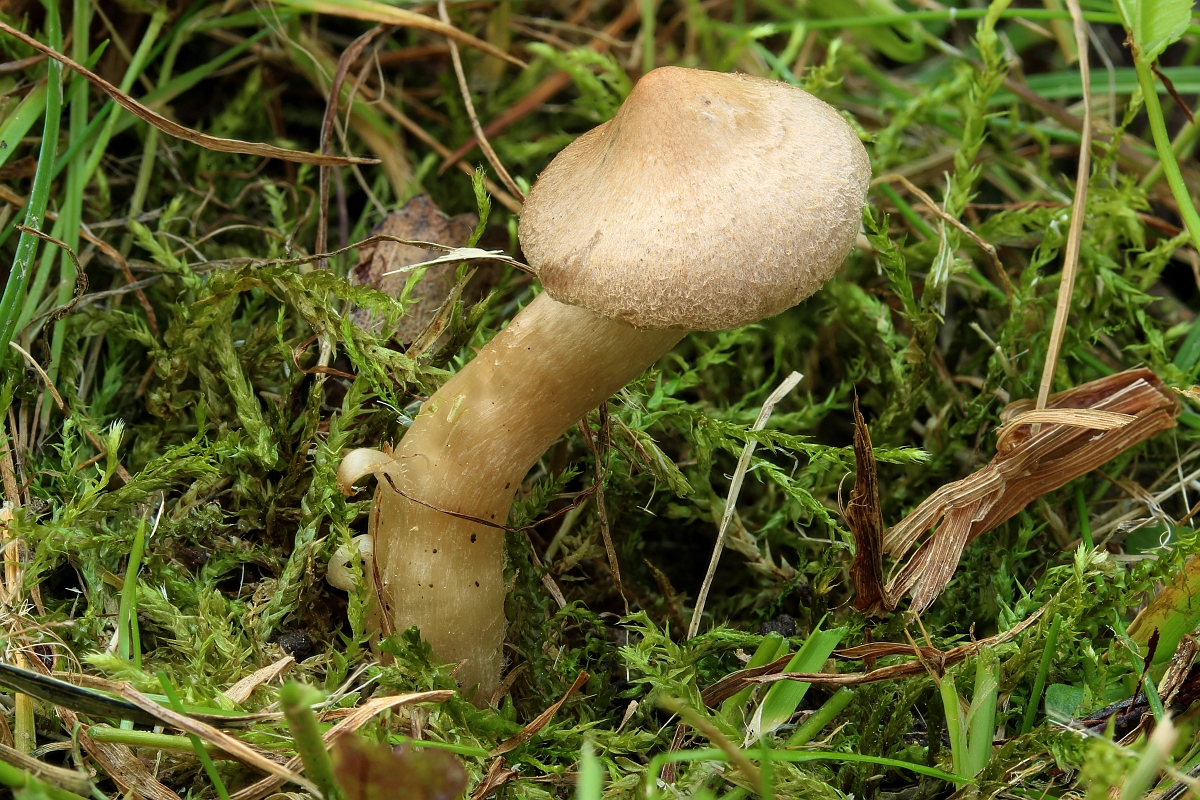
    Huthaut: gelblich braun, jung: mit abstehende Schüppchen, alt deutlich radialfaserig und eher glatt
    Hygrophanität: nicht festgestellt
    Hutrand: eingerollt
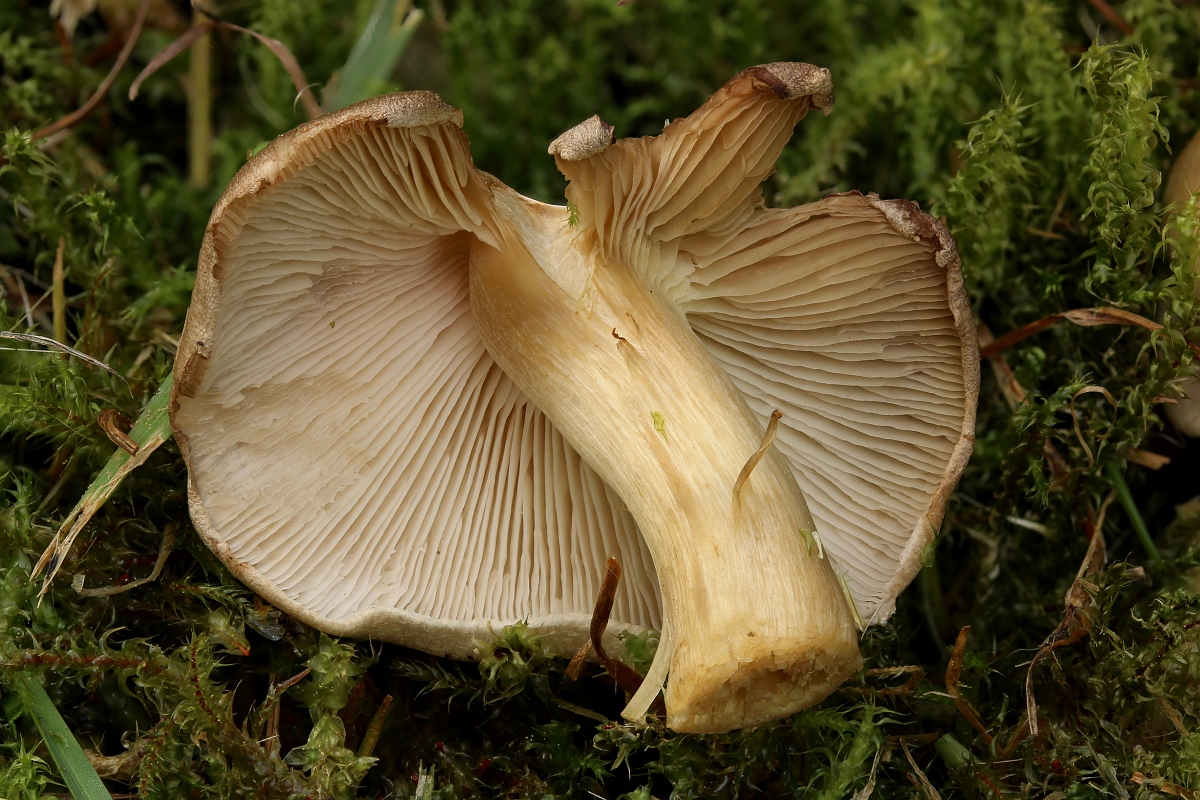
    Lamellen: weiß bis gelblich weiß, mit Zwischenlamellen, mit Y-Gabeln in Stielnähe
    Lamellenschneiden: etwas wellig
    Lamellen- Stielübergang: gerade angewachsen, etwas herablaufend
    Stiel:
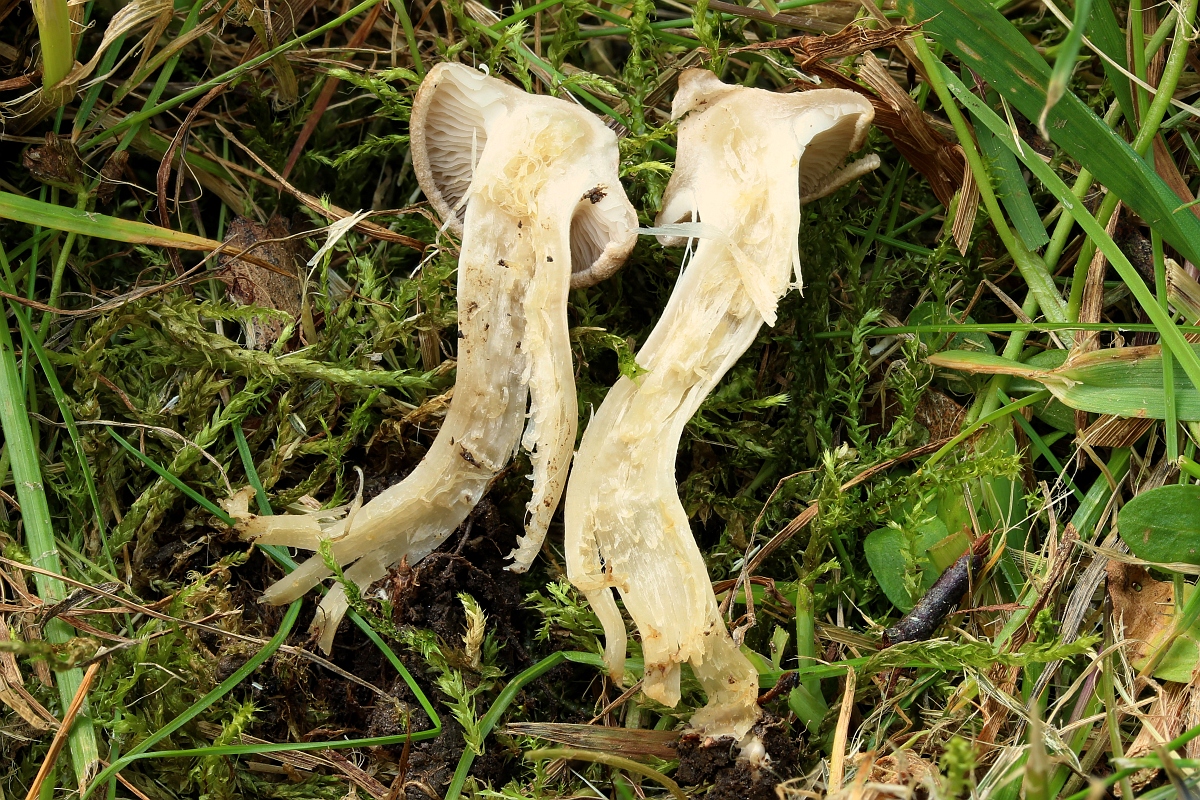
    gelblich creme, hohl, im Stiel sind gelbliche Fasern, stark gilbend
    Stielbasis: rund
    Fleisch: brüchig, komplett stark gilbend
    Größe: Hutdurchmesser ca. 3-5 cm, Stiellänge ca. 6 cm, Stieldurchmesser ca. 10 mm
    Sporenpulverfarbe: es kam nichts heraus
    Geruch: mehlig, im Alter stark unangenehm
    Geschmack: nicht probiert

    [/font]
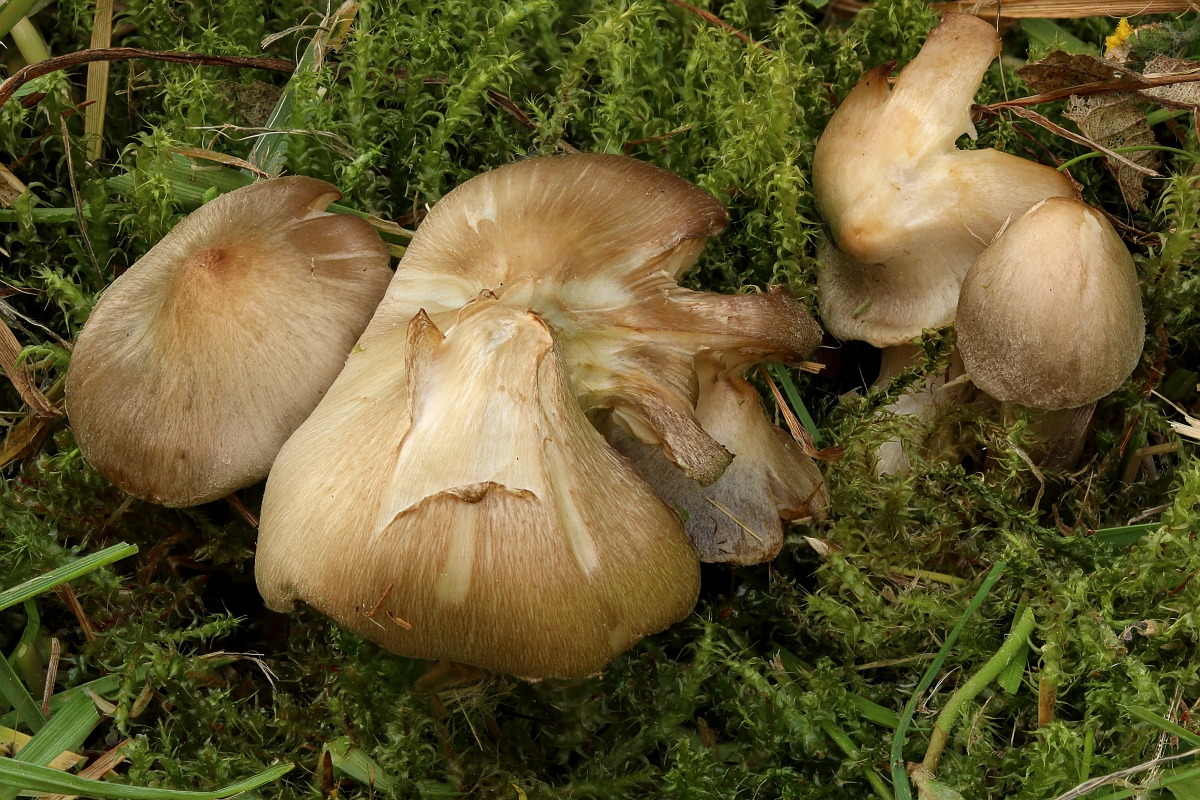
    [font="Arial"]Dieser interessante Pilz war mir zunächst ein Rätsel.
    Doch inzwischen klar (Bestimmung siehe
    Fundnummer 2015-12-05-1533) - der Risspilzähnliche Erdritterling (Tricholoma inocybeoides):
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Fundnummer: 2016-06-05-1351

    Morphologische Daten
    :
    [/font]
    [font="Arial"]Fundort: ca. 550 müNN. ca. N50, O12, auf Rasen bei Weide
    Fundzeit:
    05.06.2016
    Wuchsform: gesellig
    Hutform:
    stumpfkegelig
    Huthaut: vor dem Ausblassen: braun, Lamellen durchscheinend, nach dem Ausblassen: beige, blass rosalich
    Hygrophanität: ja, zu blass rosalich ausblassend
    Hutrand: gerieft wenn alt, leicht gezahnt
    Lamellen: braun, mit Zwischenlamellen, ohne Y-Gabeln
    Lamellenschneiden: innen rosa, außen weiß

    Lamellen- Stielübergang:
    tief ausgebuchtet angewachsen
    Fleisch: zerbrechlich
    Stiel: weiß bis leicht bräunlich, spitze stark bereif aber sonst kahl, hohl, glänzend, verbogen
    Stielbasis:
    myzelfilzig, nicht wurzelnd
    Größe:
    Hutdurchmesser ca. 0,6-1,5 cm; Stiellänge 4-7 cm, Stieldurchmesser ca. 1 mm
    Sporenpulverfarbe: schwarzviolett
    Geruch: zerrieben muffig
    Geschmack: nicht probiert

    [/font]
    [font="Arial"]Mikroskopische Daten:
    [/font]
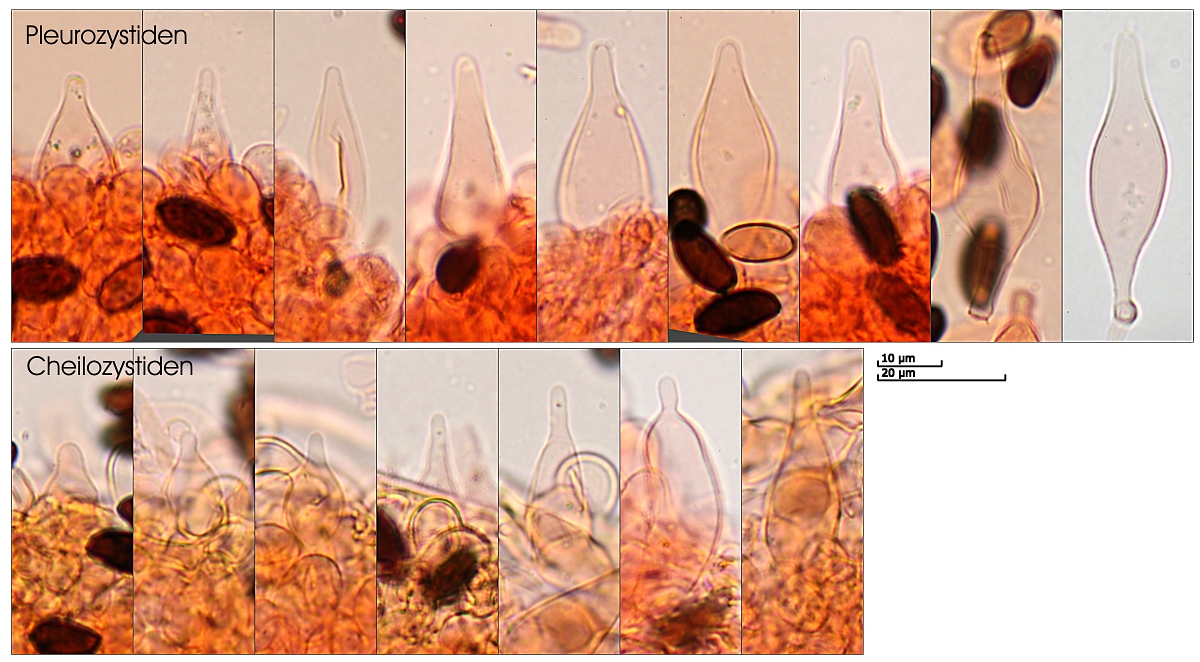
    [font="Arial"]Pleurozystiden:
    nicht besonders häufig, lageniform
    (31) 33.3 - 45.1 (45.3) x 8.3 - 13.5 (13.9) µm
    Q = (2.4) 3 - 4 (4.1) ; N = 9
    Me = 38.9 x 11.5 µm ; Qe = 3.4


    Cheilozystiden:
    sie waren auf dunkler erscheinenden Hypehnschicht, mittelhäufig urniform bis lageniform
    (18.1) 20.9 - 39.3 (41.2) x (8.7) 8.73 - 11.6 (12.4) µm
    Q = (2.1) 2.4 - 3.5 (3.9) ; N = 7
    Me = 29.2 x 9.8 µm ; Qe = 2.9

    Schnallen:
    absolut keine gefunden
    [/font]
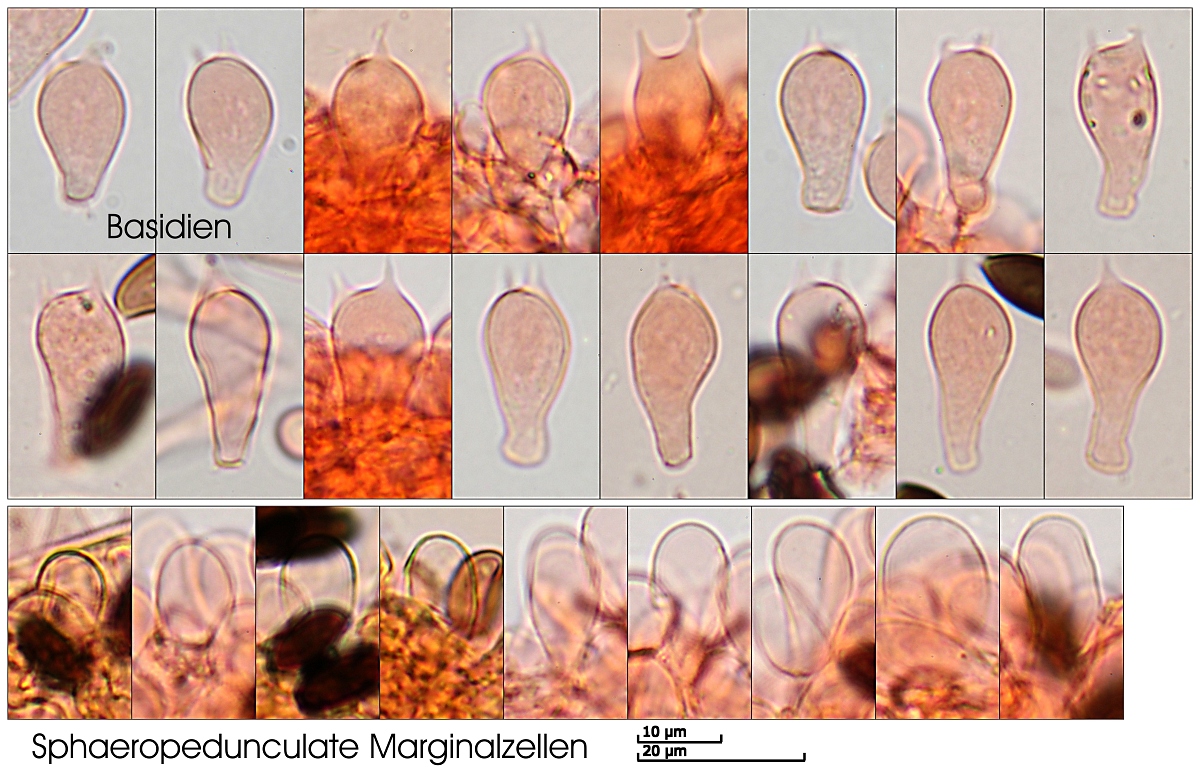
    [font="Arial"]Basidien:
    2-sporig, manche 1-sporig (nicht von den Bildern täuschen lassen)
    (17.4) 17.5 - 22.1 (22.7) x (9.4) 9.6 - 10.5 (11) µm
    Q = (1.6) 1.8 - 2.2 (2.3) ; N = 16
    Me = 19.9 x 10.1 µm ; Qe = 2

    Sphaeropedunculate Marginalzellen:
    (14.6) 16.8 - 23 (23.4) x (7.9) 8.3 - 9.5 (12.8) µm
    Q = 1.8 - 2.4 (2.5) ; N = 9
    Me = 19.8 x 9.2 µm ; Qe = 2.2
    [/font]
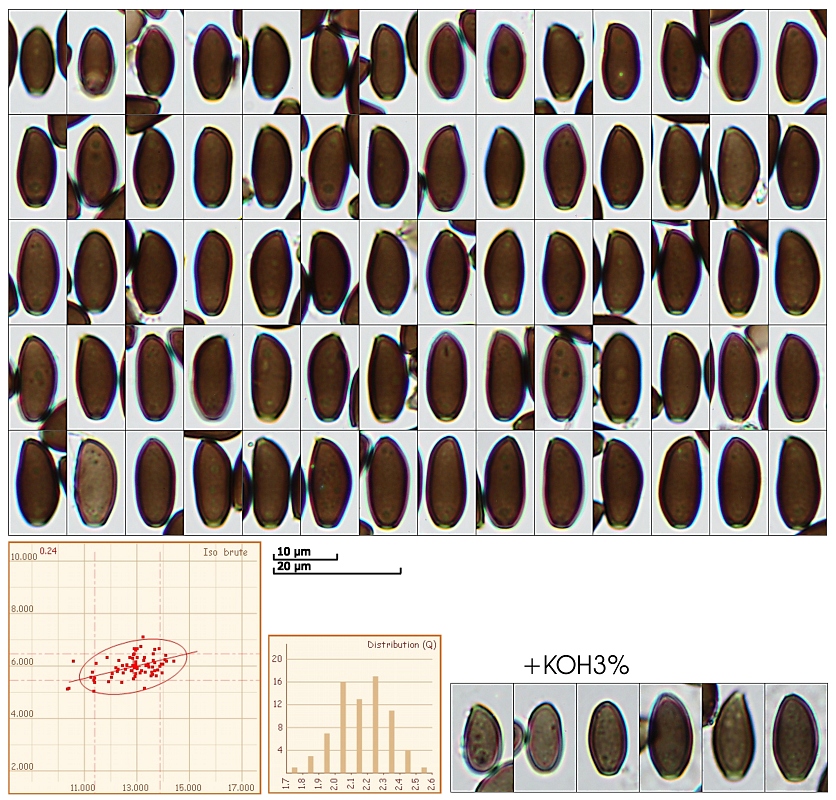
    [font="Arial"]Sporen:
    dickwandig, ellipsoid, mit Suprahilardepression, Keimporus groß und abgeflacht, In Wasser raun, in KOH 3% schwarzgrau
    (10.4) 11.4 - 13.9 (14.4) x (5) 5.4 - 6.5 (7.1) µm
    Q = (1.7) 2 - 2.4 (2.6) ; N = 73
    V = (142) 183 - 297 (350) µm ³
    Me = 12.9 x 6 µm ; Qe = 2.2 ; Ve = 242 µm ³
    [/font]
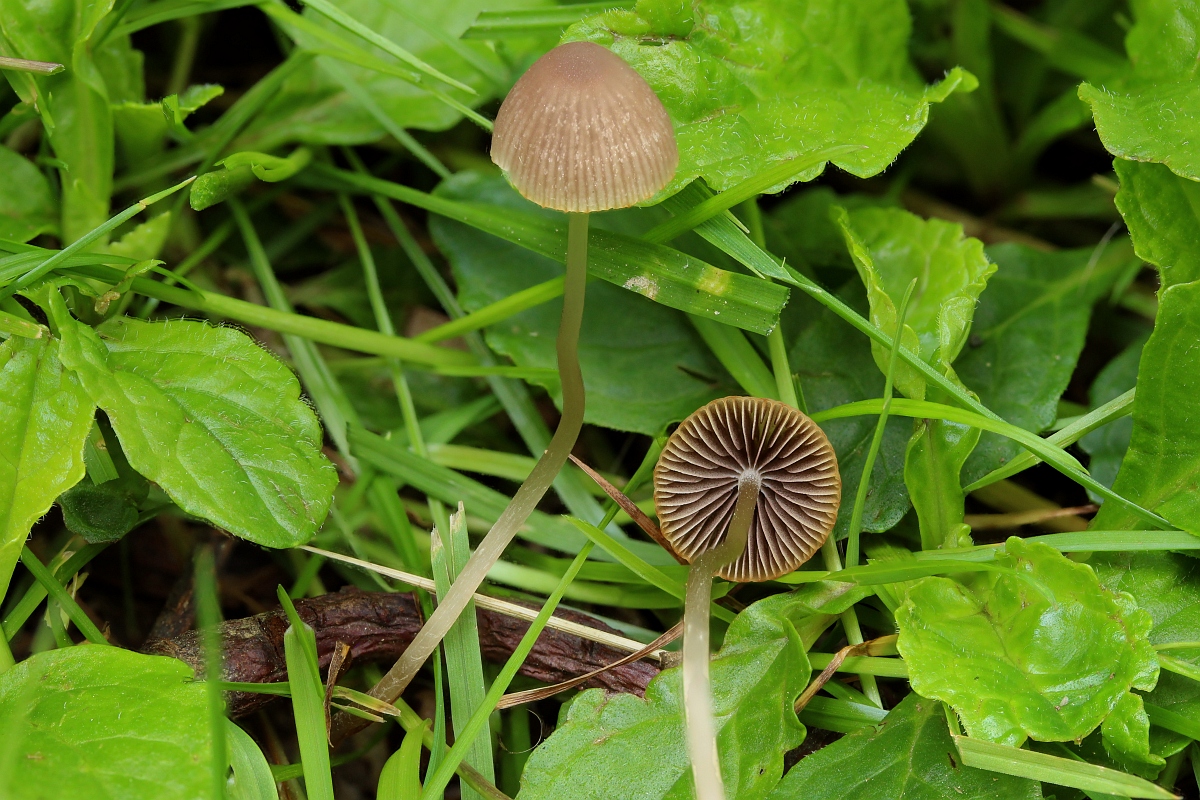
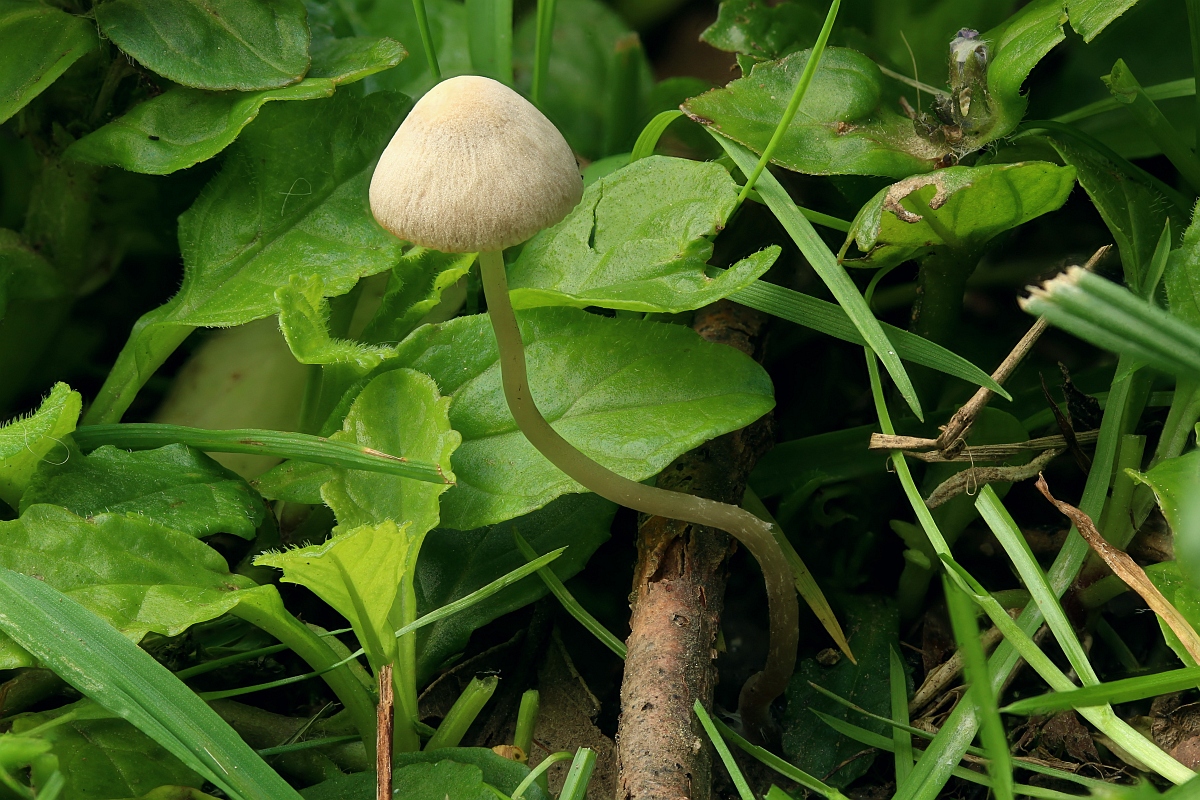
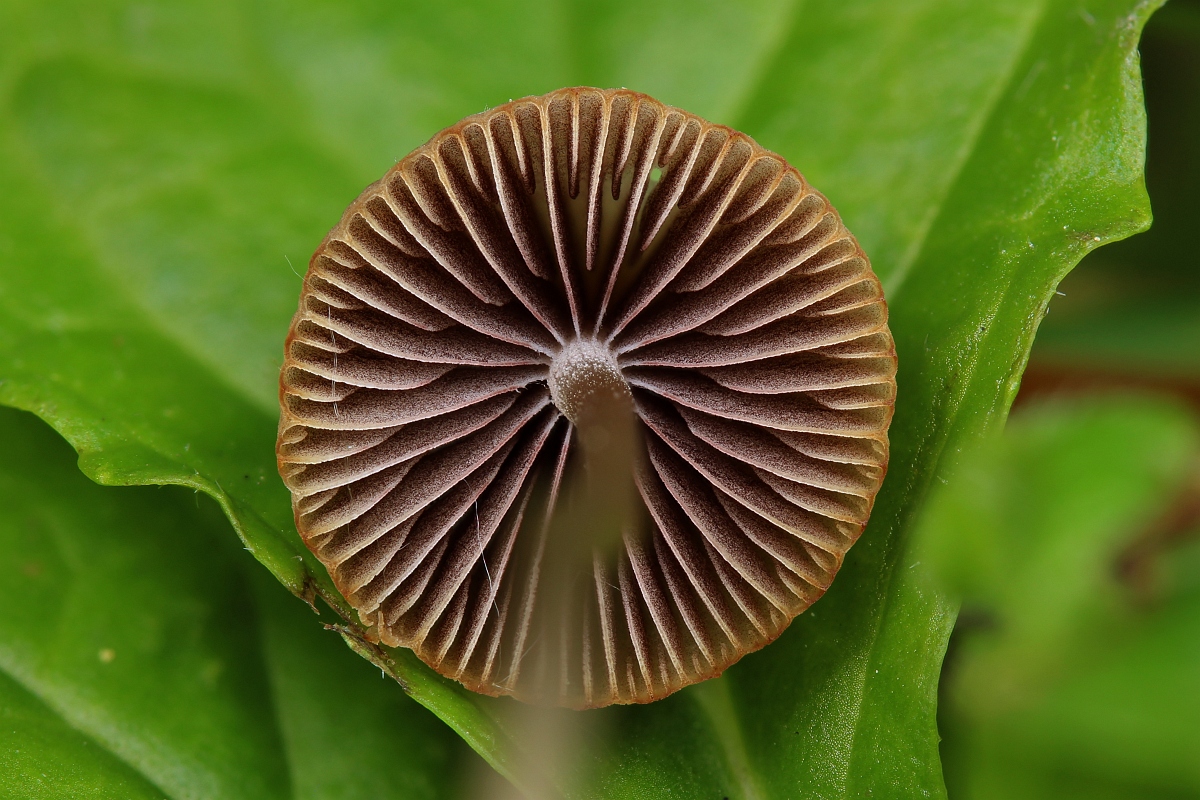
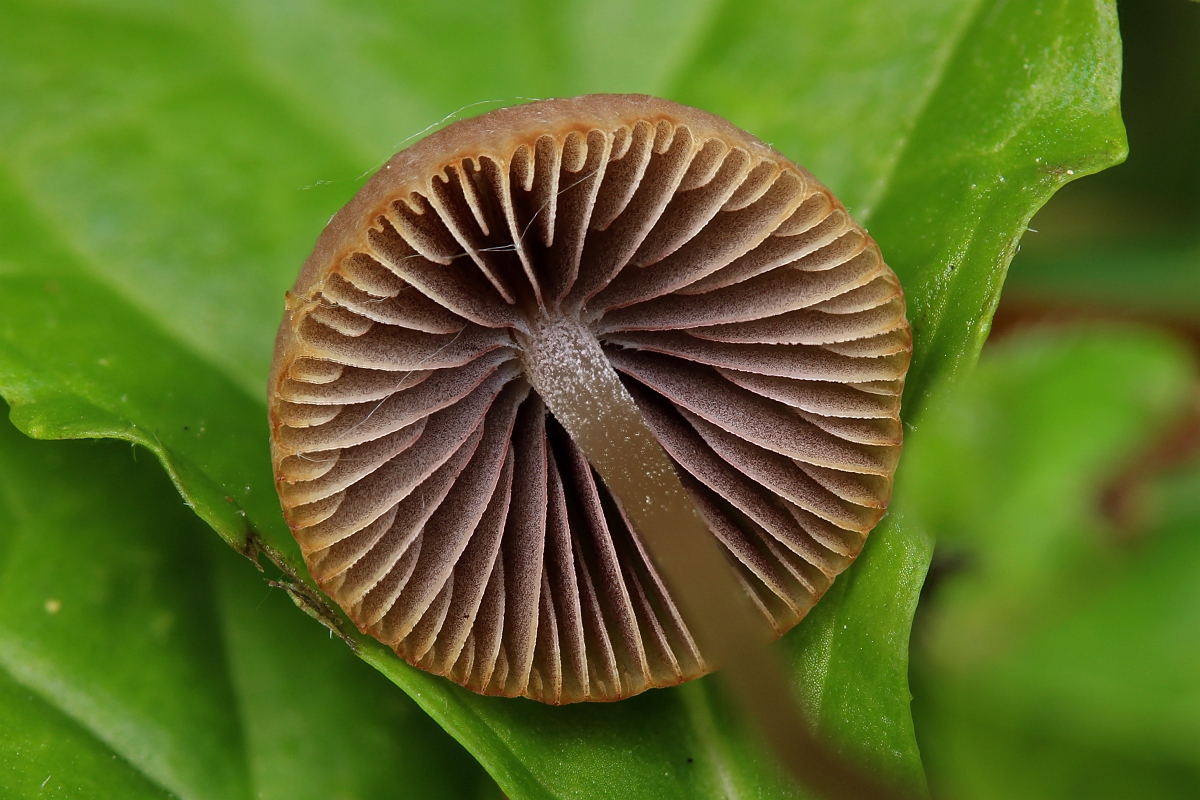
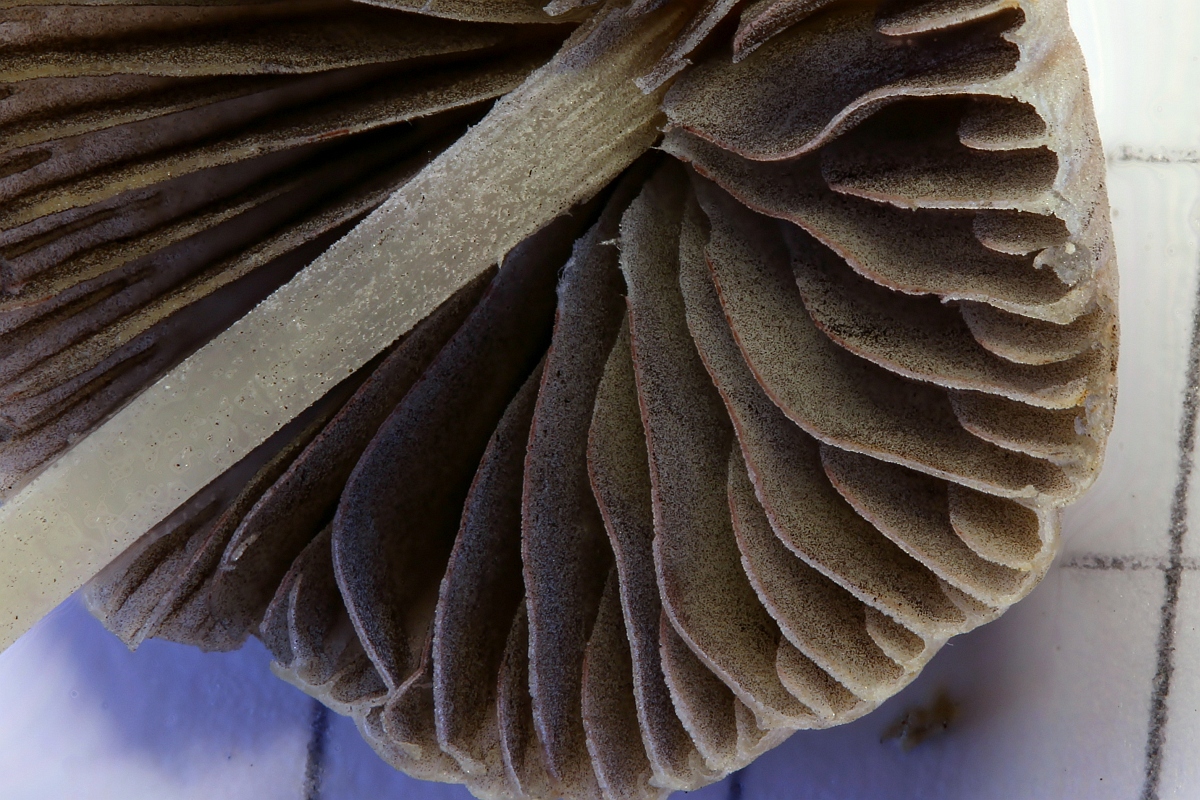
    [font="Arial"]Ich dachte zunächst an Psathyrella prona - aber der ist es wohl nicht.
    Obwohl die Sporenmaße stark vom Soll abweichen ist das nach Rücksprache mit Andreas ein
    Rotschneidiger Wegrandmürbling 2-sporig (Psathyrella prona):
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
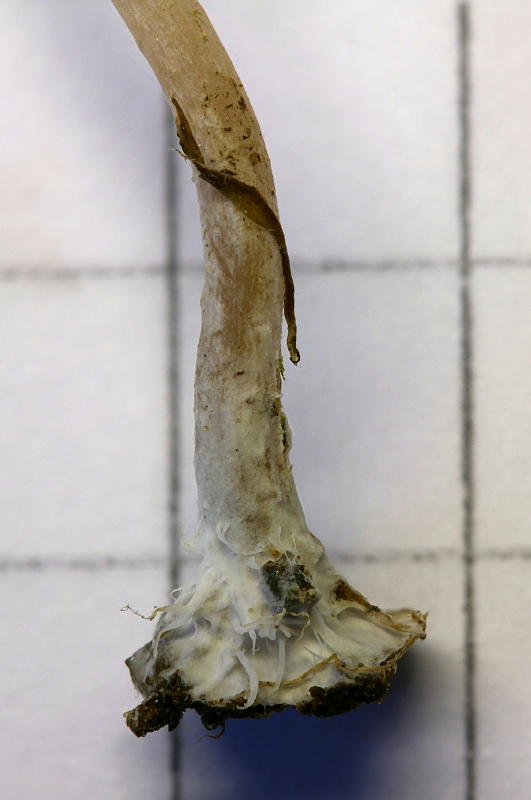
    [font="Arial"]Fundnummer: 2016-06-05-1405
    [/font]
    [font="Arial"]Morphologische Daten:
    [/font]
    [font="Arial"]Fundort: ca. 550 müNN. ca. N50, O12, bei Hainbuche im Moos
    [/font]
    [font="Arial"]Fundzeit: 05.06.2016
    Wuchsform: gesellig
    Hutform:
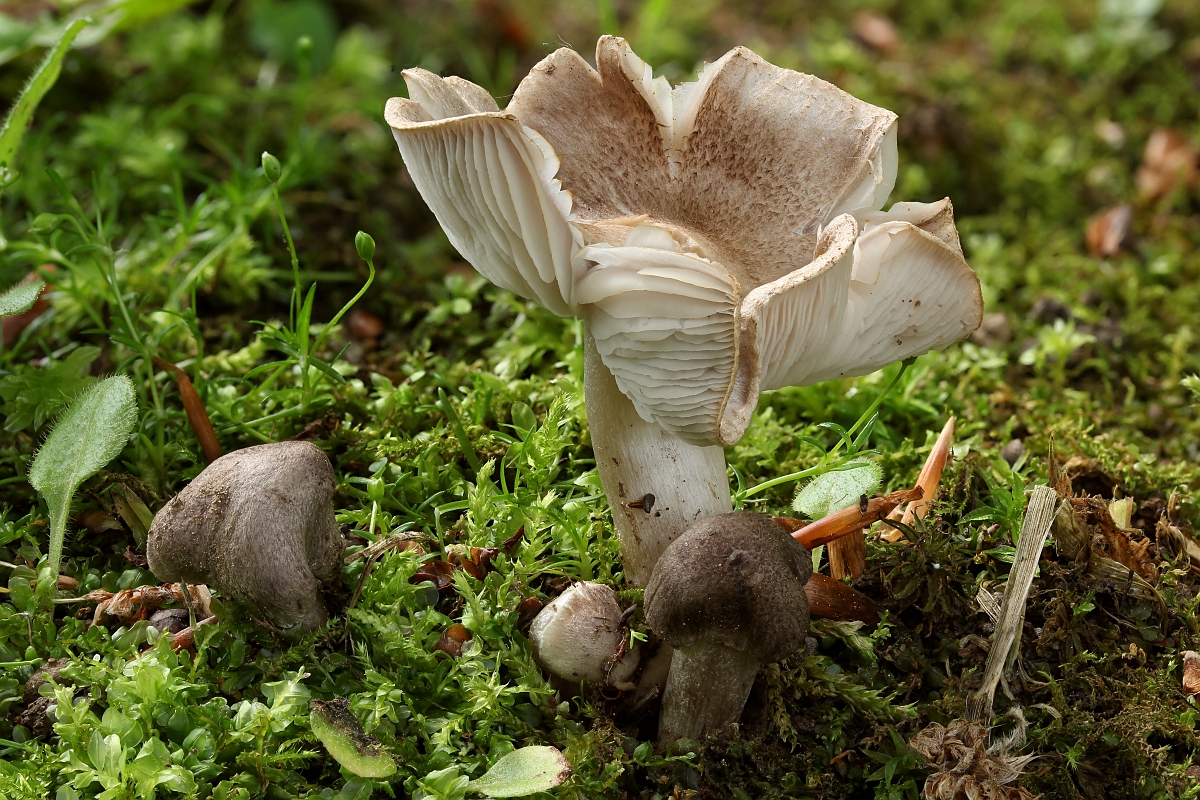
    jung: konvex, alt: nach oben gebogen und aufgerissen, mit Buckel, wellig verbogen
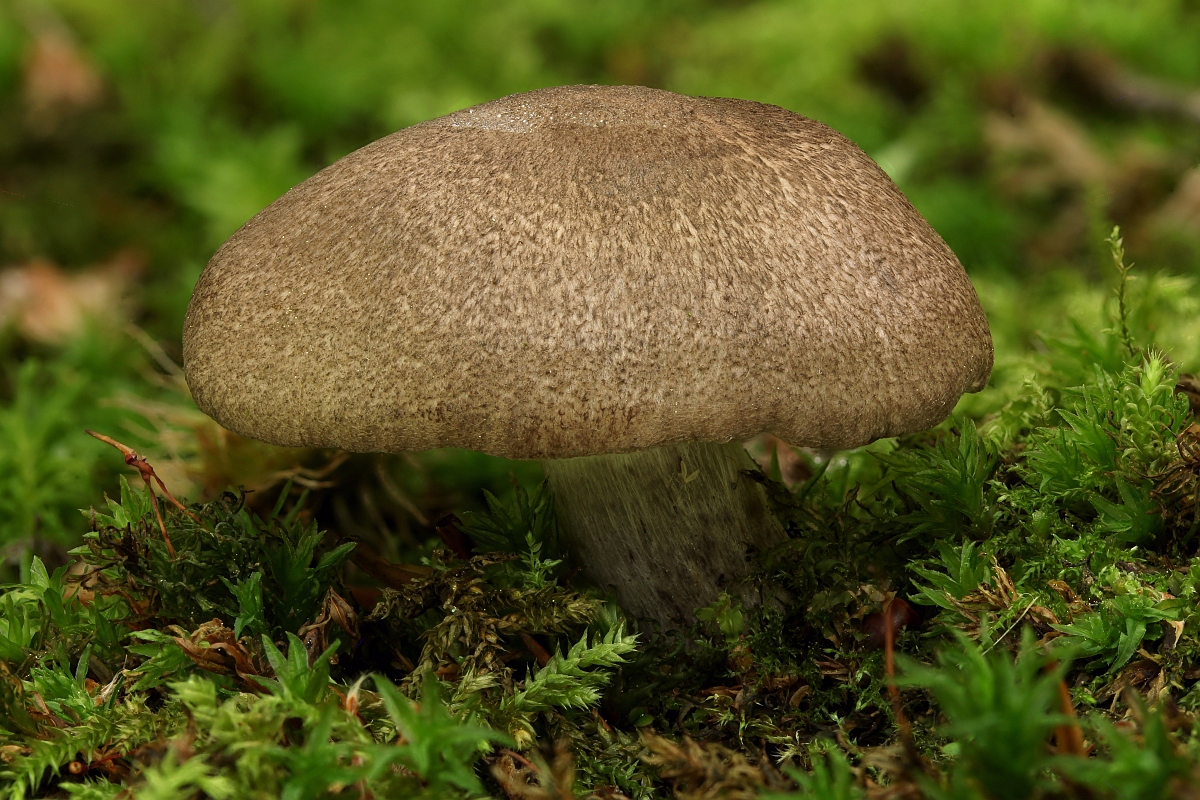
    Huthaut: fellartig mausgrau bis bräunlich, radialfaserig, fellartig geschuppt
    Hygrophanität: nein
    Hutrand: wellig, etwas eingerollt
    Schleier (Cortina) im Jugendstadium:
    schwer zu sagen, bei einem ganz jungen vorhanden, dann aber schon fehlend
    Lamellen: grauweiß, mit Zwischenlamellen
    Lamellenschneiden: etwas gesägt
    Lamellen- Stielübergang:
    ausgebuchtet angewachsen
    Stiel:
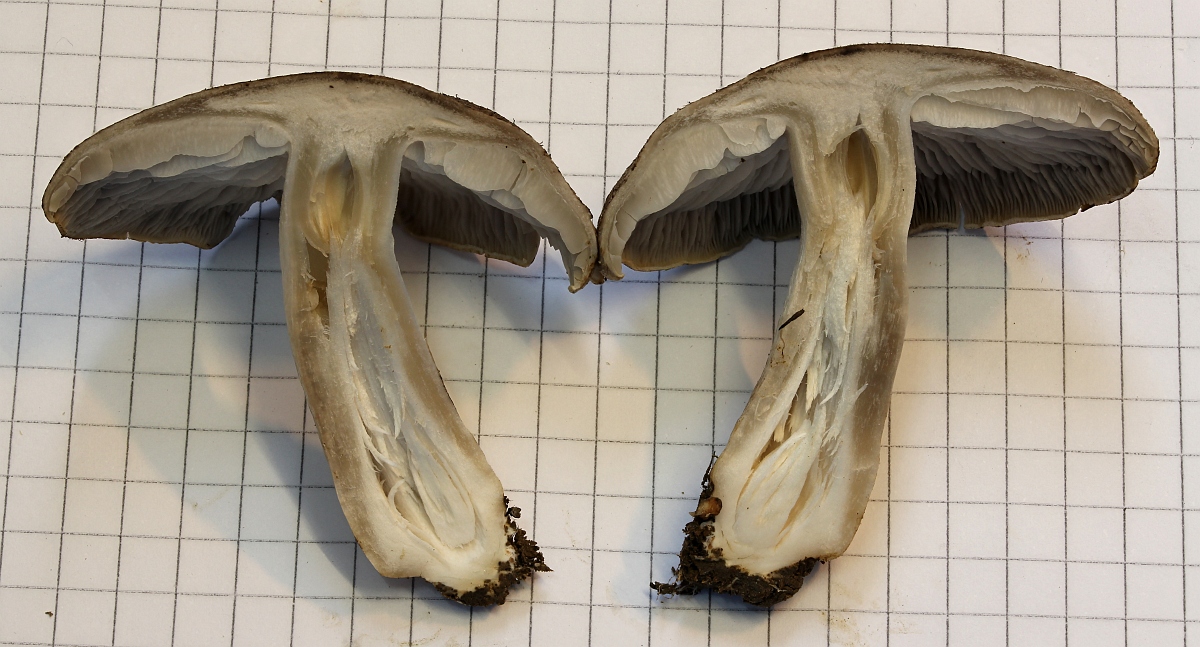
    weiß bis grau, nicht gilbend, minimal befasert, längsfaserig, hohl und faserig ausgestopft
    Stielbasis: etwas zugespitzt, etwas gelblich
    Fleisch: weiß bis grauweiß, im Schnitt überhaupt nicht gilbend (jedoch nicht lange gewartet)
    Größe: Hutdurchmesser ca. 3-5 cm, Stiellänge ca. 3-4 cm, Stieldurchmesser ca. 10 mm
    Sporenpulverfarbe: weiß
    Geruch: mehlig
    Geschmack: nicht getestet

    [/font]
    [font="Arial"]Mikrodaten:
    Sporen:
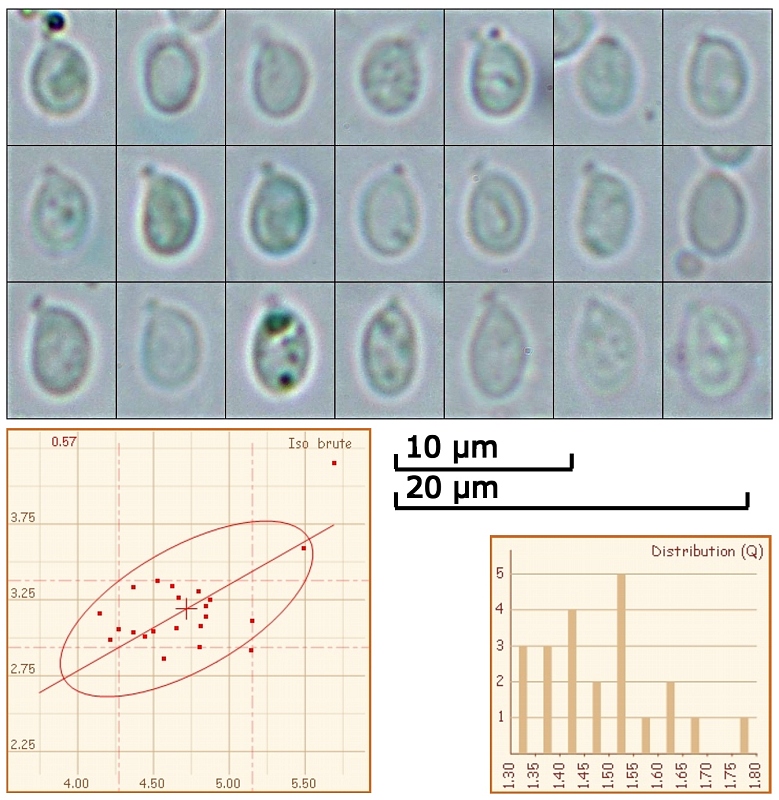
    Achtung: Die Messung wurde nicht vom Sporenabwurf gemacht sondern von einem Stück Lamelle.
    (4.1) 4.3 - 5.2 (5.7) x (2.9) 2.94 - 3.4 (4.2) µm
    Q = (1.3) 1.34 - 1.6 (1.8) ; N = 22
    V = (20) 21 - 27 (51) µm ³
    Me = 4.7 x 3.2 µm ; Qe = 1.5 ; Ve = 26 µm ³


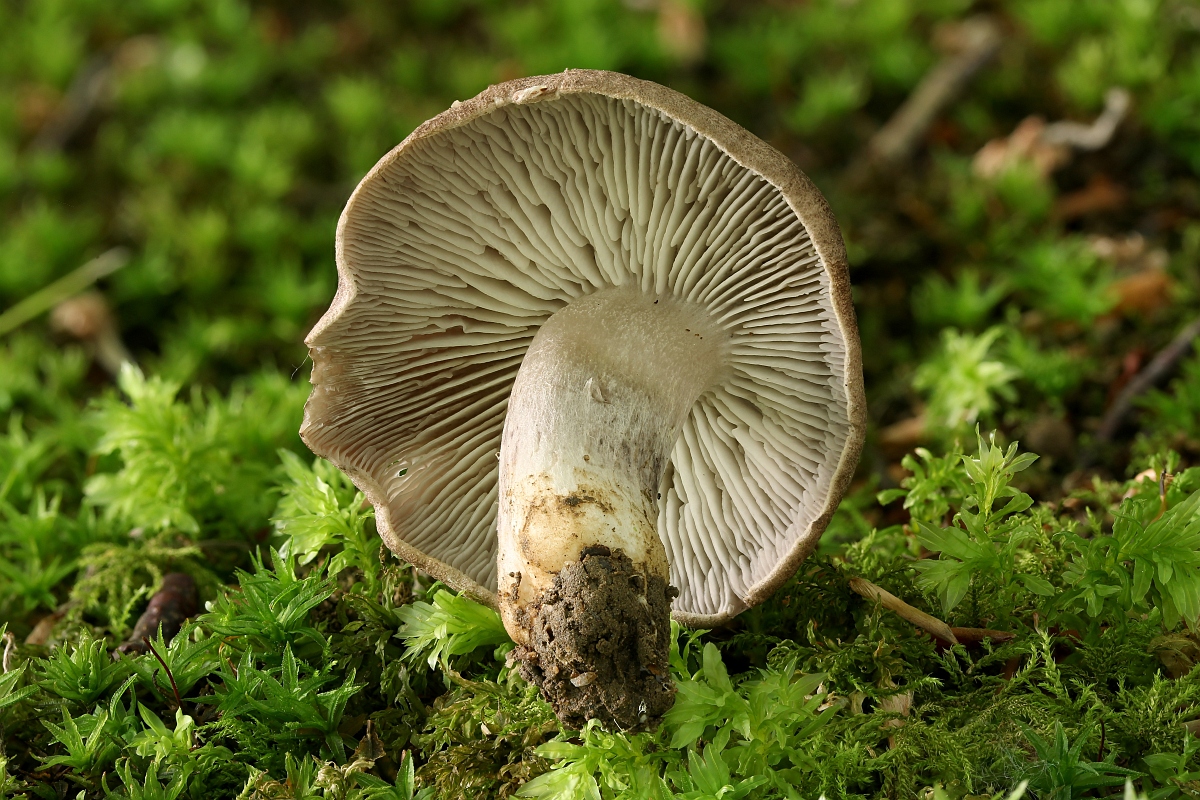
    Man landet hier natürlich bei dem Komplex: Gilbender Erdritterling (Tricholoma scalpturatum), Schmalsporiger Gilbender Erdritterling (Tricholoma argyraceum) und Risspilzähnlicher Erdritterling (Tricholoma inocybeoides).
    Die beste mir bekannte Studie (ohne Genanalyse) zu diesem Komplex ist die von Christian Gubitz der hunderte Kollektionen von gilbenden Ritterlingen untersuchte und zum nachvollziehbaren Schluss kam, dass sich diese 4 Arten manchmal weder morphologisch noch mikroskopisch unterscheiden lassen.
    Zu finden ist diese wunderbare Studie in der Zeitschrift für Mykologie, Band 68/2, Jahr 2002.
    Keine der oft genannten Unterscheidungsmerkmale - also: Sporenmaße, Sporenform, Huthauthyphen, Verfärbungsintensivität und Schleier (Cortina) im Jugendstadium sind seinen Beobachtungen nach ein konstantes Trennungsmerkmal.
    Auch bei meinem Fund tue ich mich schwer ihn dem Gilbenden Erdritterling (Tricholoma scalpturatum) oder dem Schmalsporigen Gilbender Erdritterling (Tricholoma argyraceum) zuzuordnen. Der Q-Max-Wert 1,6 liegt nämlich zwischen den beiden Sollwerten dieser beiden Arten 1,5 und 1,9.
    Die Sporenmaße und die Morphologie passen besser zu argyraceum während der Q-Wert eher zu scalpturatum passt.
    Es überwiegt aber hier argyraceum - eben wegen der Morphologie und deshalb weil eben die Sporen nicht von einem Abwurf stammen und Q deshalb wohl noch steigen wird.
    Zu erwähnen in diesem Komplex ist noch der Beringte Erdritterling (Tricholoma cingulatum) - das ist der nächste Verwandte zu argyraceum.
    Was nun?
    Die Frage ist zunächst: Gibt es eine gentechnische Unterscheidungsmöglichkeit dieses Komplexes?
    Die Studie: "Phylogenetic species delimitation in ectomycorrhizal fungi and implications for barcoding: the case of the Tricholoma scalpturatum complex (Basidiomycota)" von PATRICIA JARGEAT, FLORENT MARTOS, FABIAN CARRICONDE, HERVE ´ GRYTA, PIERRE-ARTHUR MOREAU und MONIQUE GARDES (Jahr 2010) zeigt ganz klar: ja.
    Siehe unbedingt dort auf Seite 8 das wunderbare Phylogramm des Komplexes.
    Es ist also zulässig, die 4 Arten des Komplexes zu unterscheiden.
    Ich bestimme (aus oben genannten Grund) diesen also als den Schmalsporigen Gilbenden Erdritterling (Tricholoma argyraceum):
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Fundnummer: 2016-06-05-1439
    [/font]
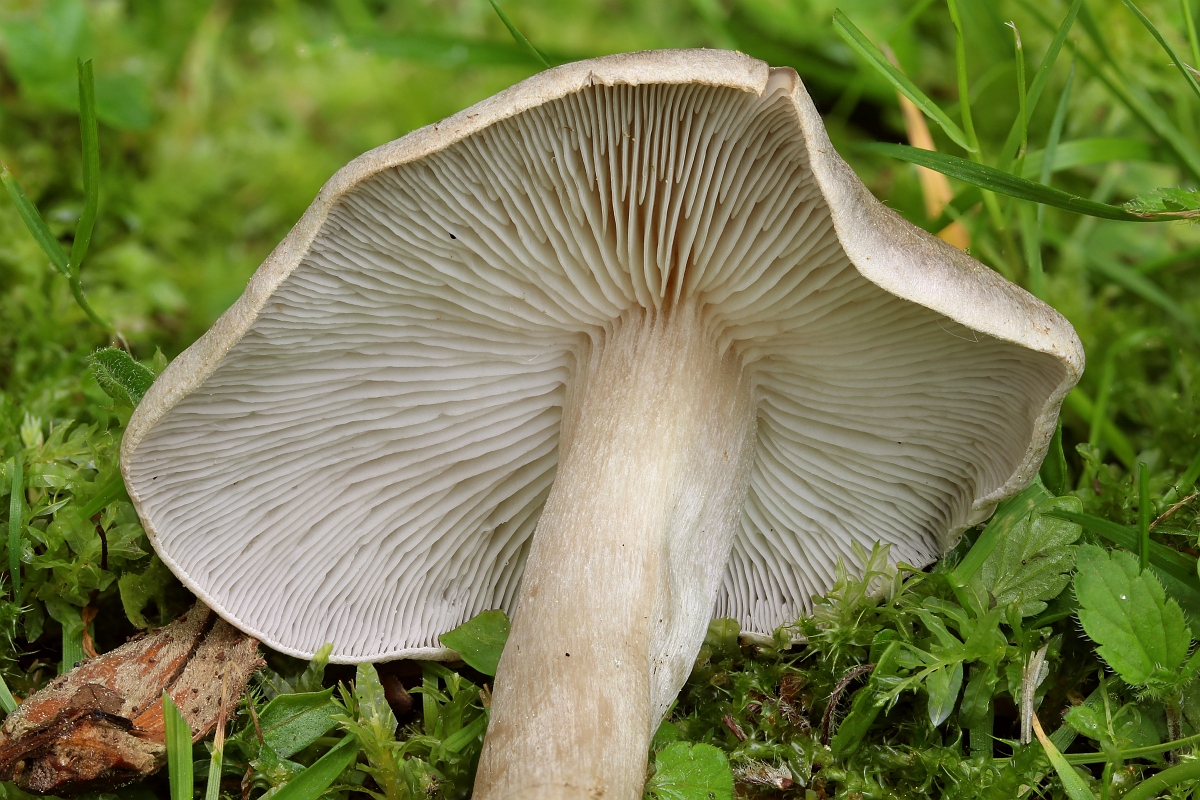
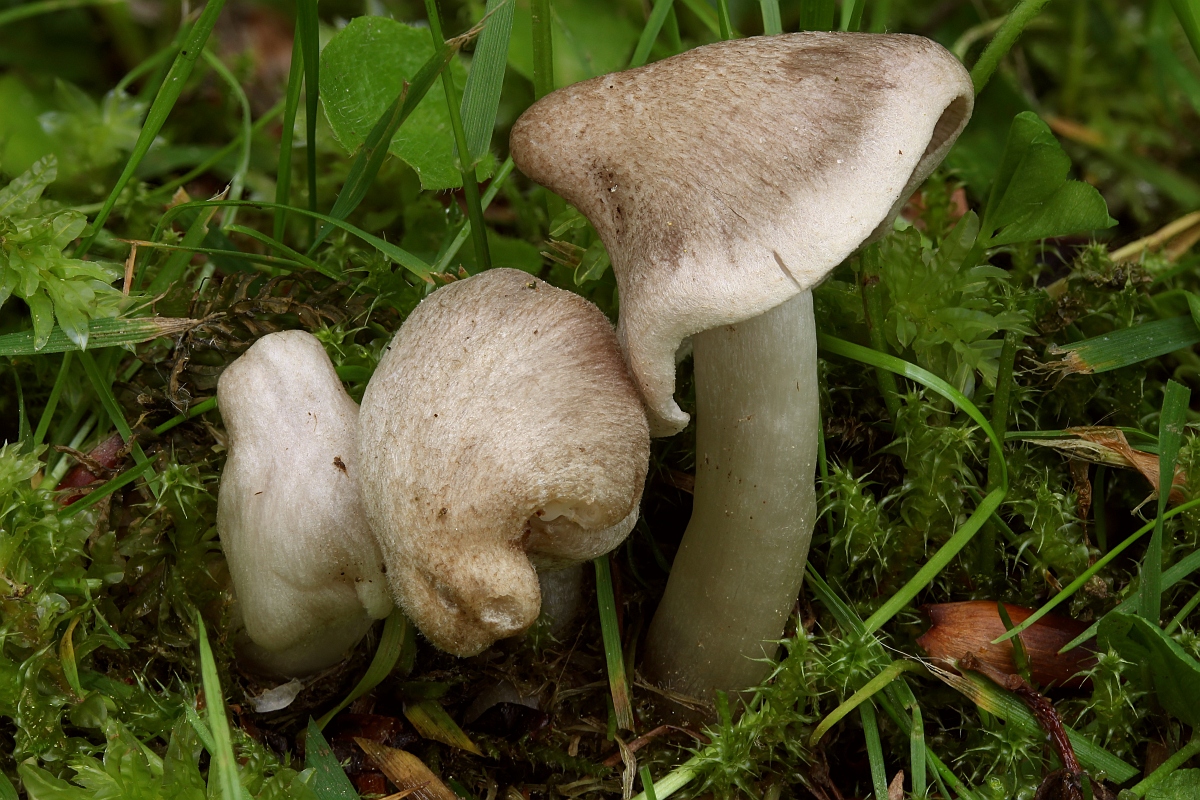
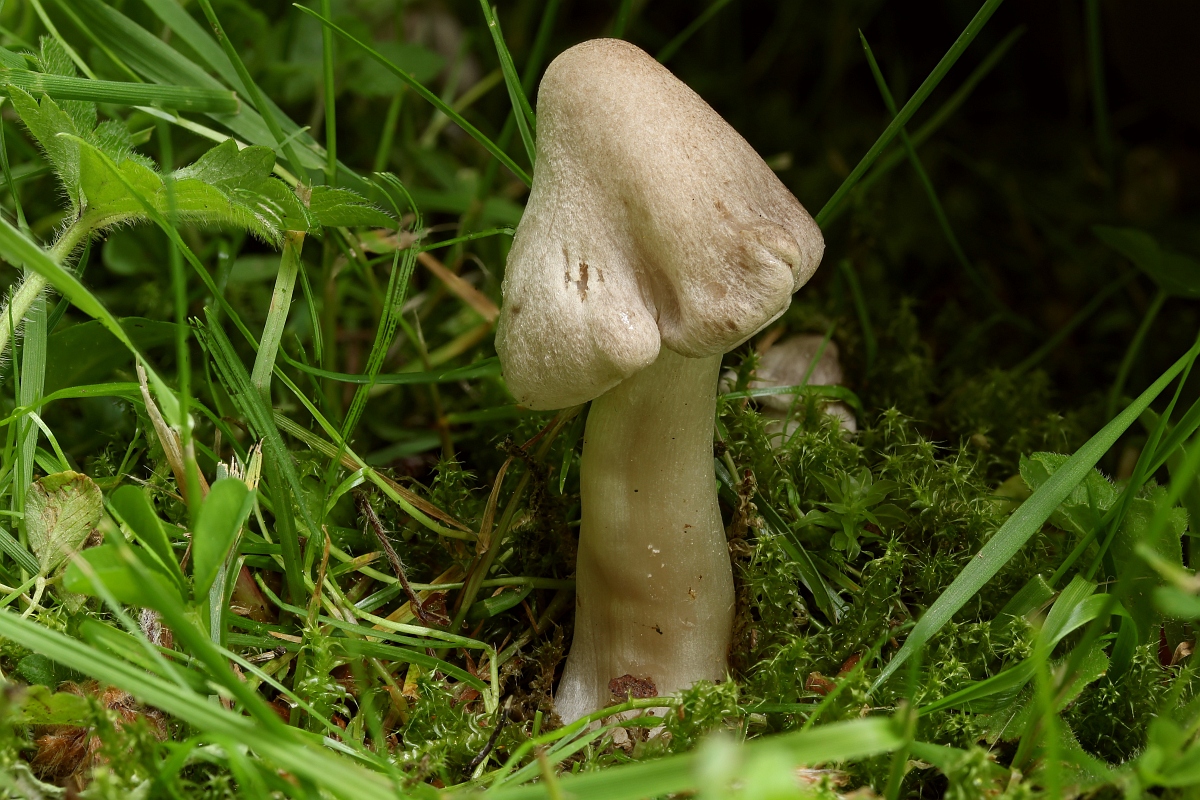
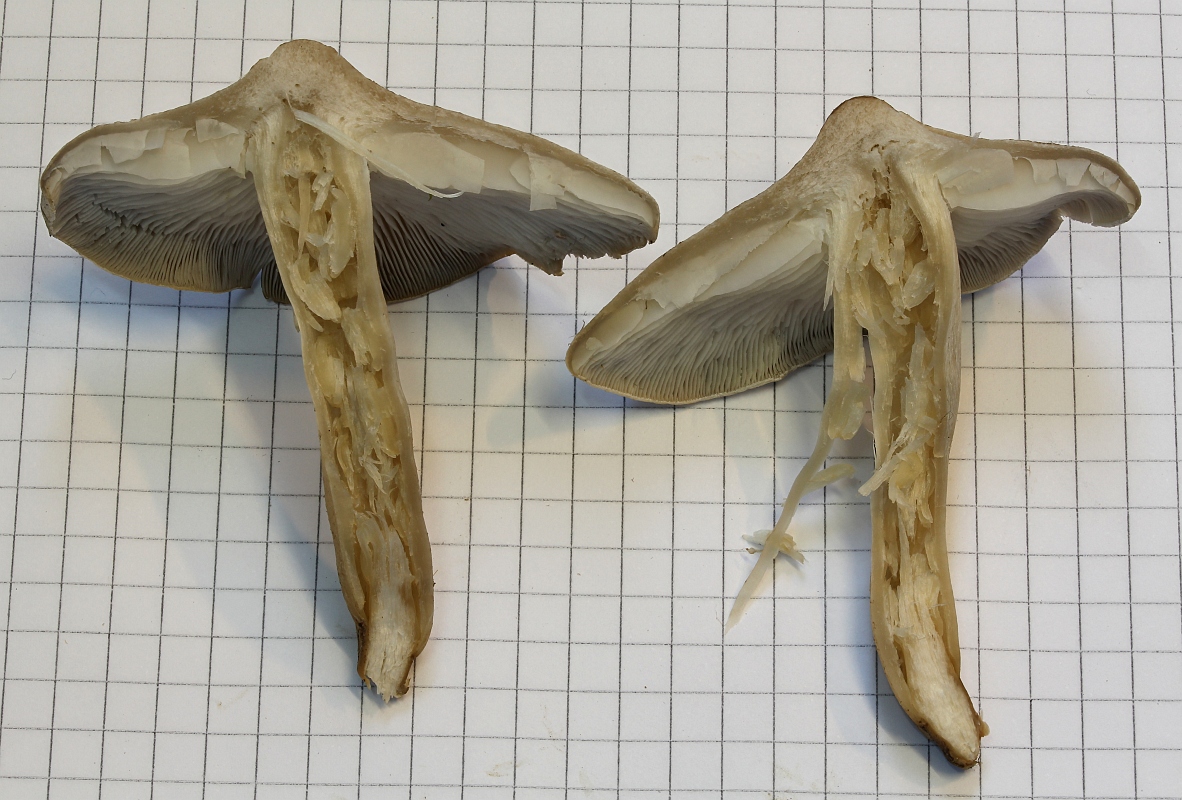
    [font="Arial"]Schon am Fundort merkte ich dass dieser Erdritterling völlig anders aussah als die, die ich bisher sah.
    [/font]
    [font="Arial"]Morphologische Daten:

    Fundort: ca. 550 müNN. ca. N50, O12, auf Rasen, bei Hainbuche
    Fundzeit:
    05.06.2015
    Wuchsform: gesellig
    Hutform:
    jung: Spitzkegelig, alt: ausgeflacht mit deutlichem Spitzbuckel
    Huthaut: hellgrau, leicht schuppig
    Hygrophanität: nicht festgestellt
    Hutrand: minimal eingerollt
    Schleier (Cortina) im Jugendstadium: schwer zu sagen, da nicht ganz jung zu finden, ich tendiere zu fehlend
    Lamellen: weiß mit Graustich, mit vielen Zwischenlamellen, mit wenig Y-Gabeln
    Lamellenschneiden: ohne Besonderheiten
    Lamellen-Stielübergang:
    ausgebuchtet angewachsen, etwas herablaufend
    Stiel:
    weiß glänzend, gelblich überfasert, bei Berührung deutlich gilbend, hohl, mit Fasern ausgestopft
    Stielbasis: zugespitzt
    Fleisch: grau bis grauweiß, im Schnitt minimal gilbend
    Größe: Hutdurchmesser ca. 3-8 cm, Stiellänge ca. 4-5 cm, Stieldurchmesser ca. 8 mm
    Sporenpulverfarbe:
    weiß
    Geruch: am Fruchtkörper mehlig, deutlich mehlig im Schnitt
    Geschmack: nicht probiert

    Mikrodaten:

    Sporen:
    Achtung: Die Bewertung wurde nicht vom Sporenabwurf gemacht sondern von einem Stück Lamelle.
    (4.7) 4.8 - 6 x (2.7) 2.8 - 3.15 (3.2) µm
    Q = (1.5) 1.6 - 1.9 (2.2) ; N = 16
    V = (20) 21 - 31 (32) µm ³
    Me = 5.3 x 2.9 µm ; Qe = 1.8 ; Ve = 24 µm ³
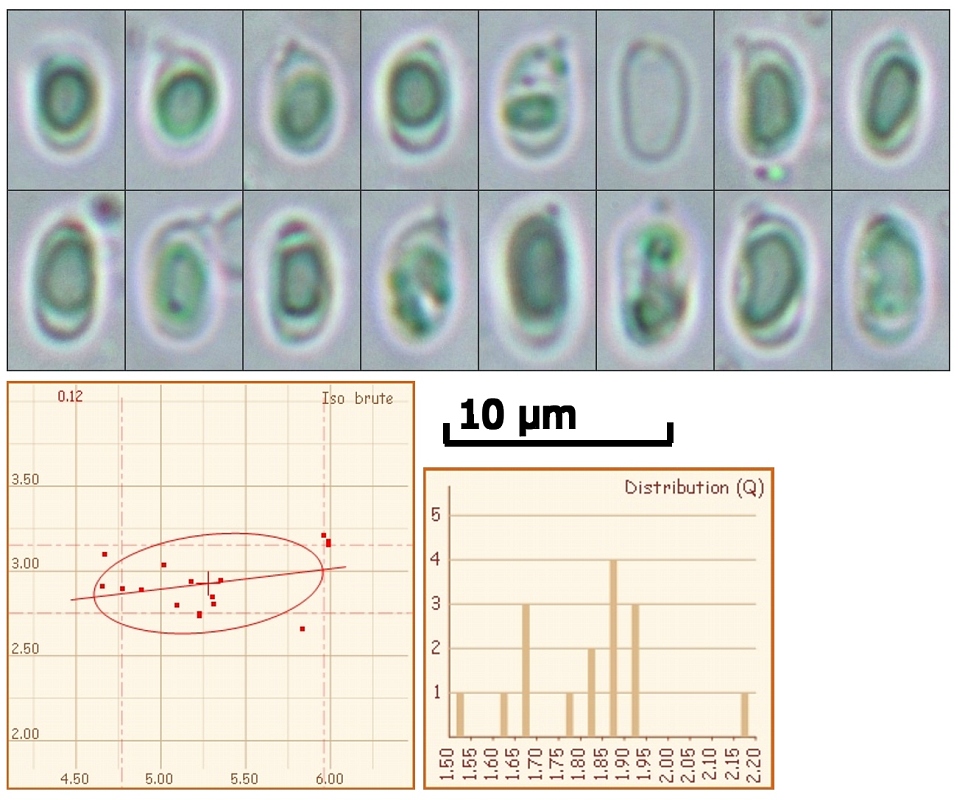


    Ebenso der eben erwähnte Komplex.
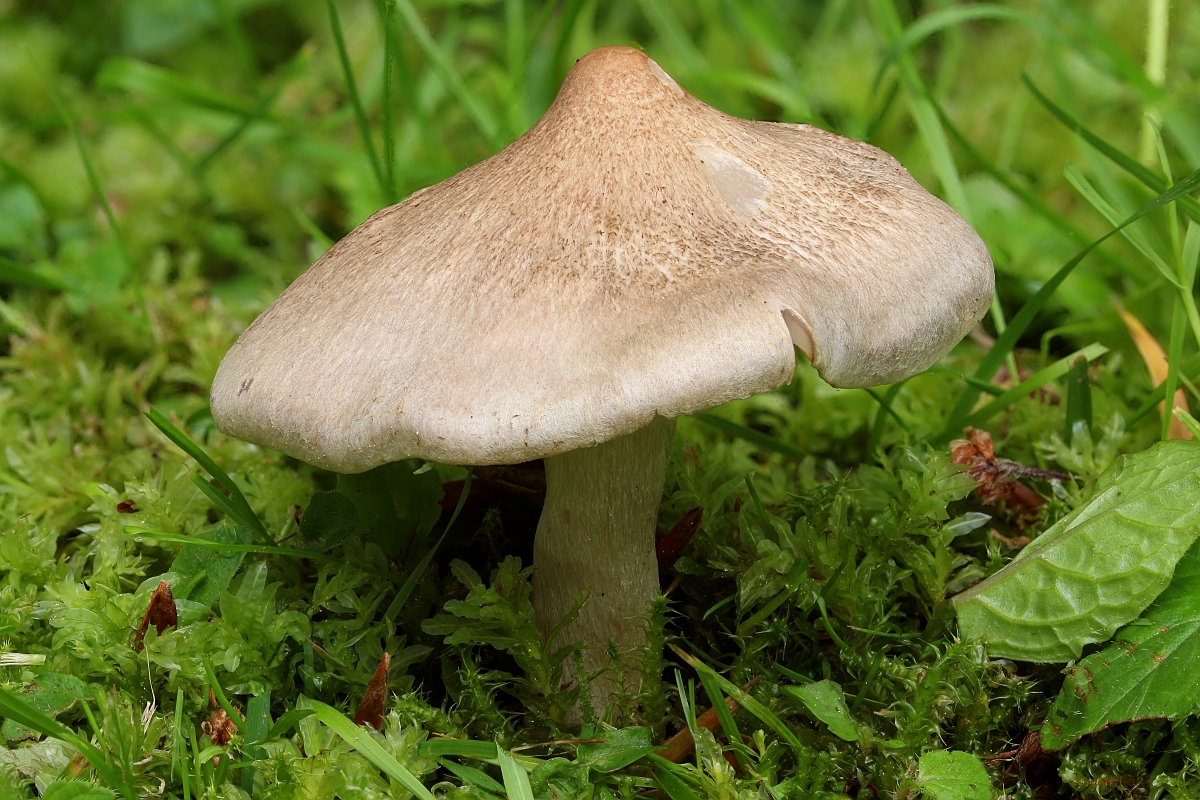
    Auch diesen, der an einem ganz anderen Standort als Fundnummer 2016-06-05-1332 zu finden war stufte ich als
    den Risspilzähnlichen Erdritterling (Tricholoma inocyboides) ein.
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Fundnummer: 2016-06-05-1447
    [/font]
    [font="Arial"]Wieder ein Waldfreundrübling der vor Ort nicht eindeutig zu klären war.
    [/font]
    [font="Arial"]Morphologische Daten:

    Fundort: ca. 550 müNN. ca. N50, O12, auf Rasen im Moos bei verschiedenen Laubbäumen
    Fundzeit:
    05.06.2016
    Wuchsform: gesellig
    Hutform:
    konvex über flach bis nach oben gebogen, stark wellig verbogen
    Huthaut: braun bis später pink-ocker, glatt, Lamellen am äußeren Rand durchscheinend
    Hygrophanität: ja
    Hutrand: scharfkantig, deutlich durchscheinend gestreift
    Lamellen: creme, teils gelblich, rotfleckig, mit in der Fläche welligen Zwischenlamellen, inverse Y-Gabeln
    Lamellenschneiden:
    minimal gezahnt

    Lamellen-Stielübergang:
    ausgebuchtet angewachsen
    Stiel: oben ocker, nach unten hin orange-bräunlich werdend, verdreht
    Stielbasis: mit Mycelfäden
    Fleisch:
    ohne Besonderheiten
    Größe: Hutdurchmesser ca. 2-4 cm, Stiellänge ca. 2-5 cm, Stieldurchmesser ca. 3-5 mm
    Sporenpulverfarbe: nicht getestet
    Geruch: zerrieben deutlich fruchtig, fast parfümiert
    Geschmack: nicht getestet

    [/font]
    [font="Arial"]Mikrodaten:
    Sporen (nur schnell von Lamellenschneide gemessen):
    (4.4) 4.6 - 6.7 (6.8) x (2.3) 2.32 - 3.7 (3.9) µm

    Q = (1.4) 1.5 - 1.9 (2.3) ; N = 11
    V = (12) 14 - 48 (55) µm ³
    Me = 5.8 x 3.2 µm ; Qe = 1.8 ; Ve = 34 µm ³

    [/font]
    [font="Arial"]Cheilozystiden:
    verzweigt, kaum divertikuliert, manchmal längeren Hals ausbildend
    (22.6) 34.3 - 58.4 (60.9) x (4.2) 4.6 - 7.2 (8.2) µm
    Q = (4.8) 4.9 - 9.6 (11.6) ; N = 11
    Me = 42.2 x 5.7 µm ; Qe = 7.5
    [/font]
    [font="Arial"]
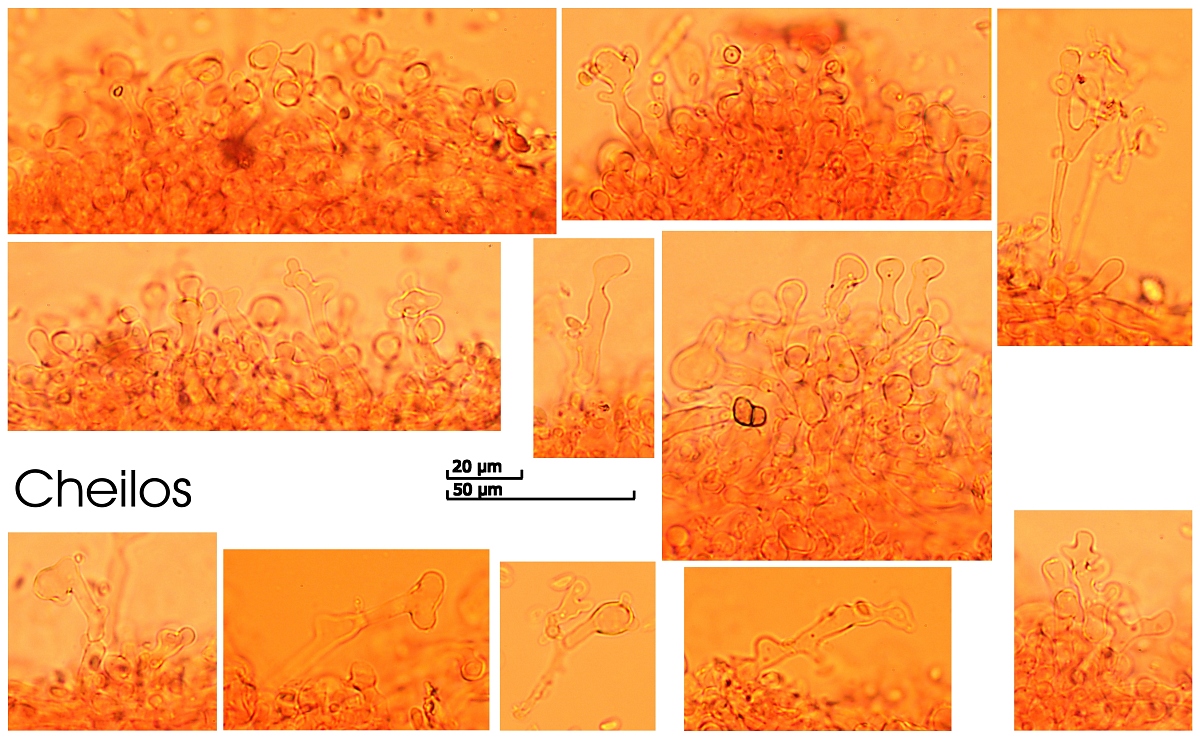
    [/font]
    [font="Arial"]Wieder mal schwer zu sagen.
    In meinem Bericht vom 31.05.2016 habe ich die Problematik schon einmal erklärt.
    Die Cheilozystiden-Form passt am ehesten zu Gymnopus
    dryophilus.
    Der Teilweise sehr dünne Hals und die starken Verästelungen kommen bei ocior nicht vor.
    Ebenso der stark gerieft Hutrand sind ein deutliches Zeichen für dryophilus.


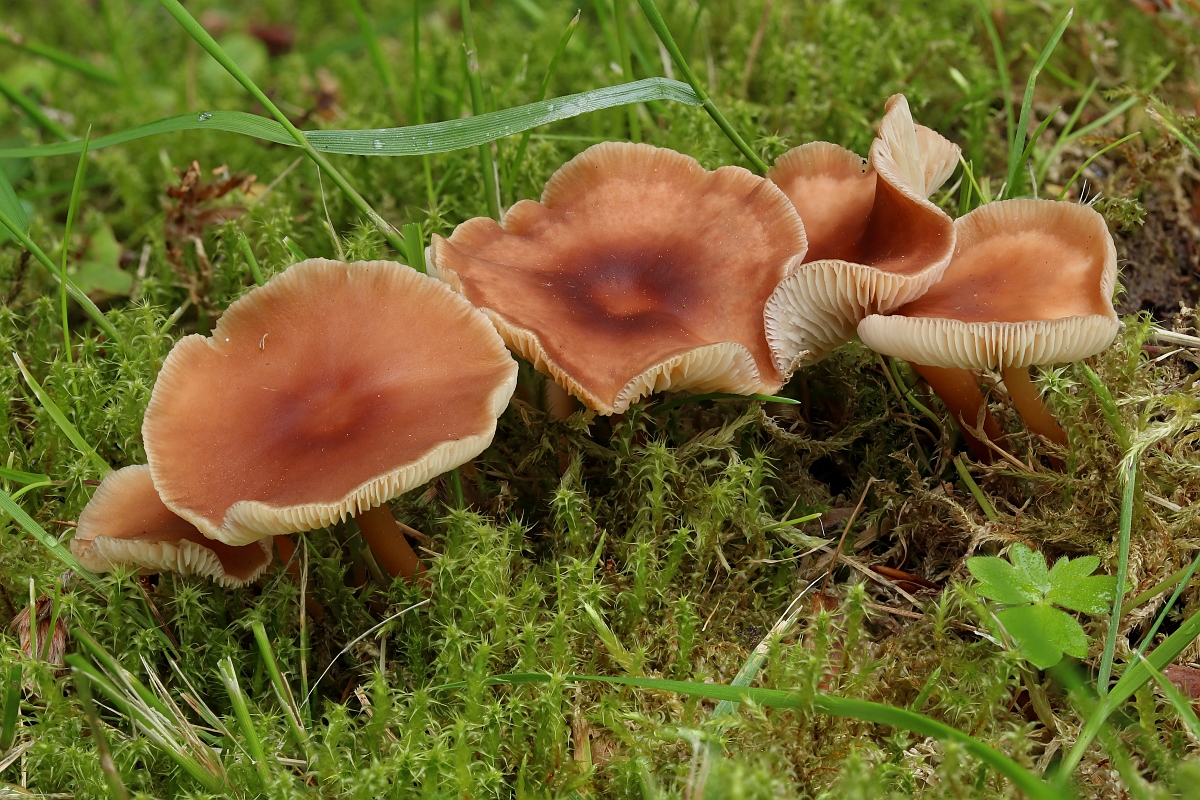
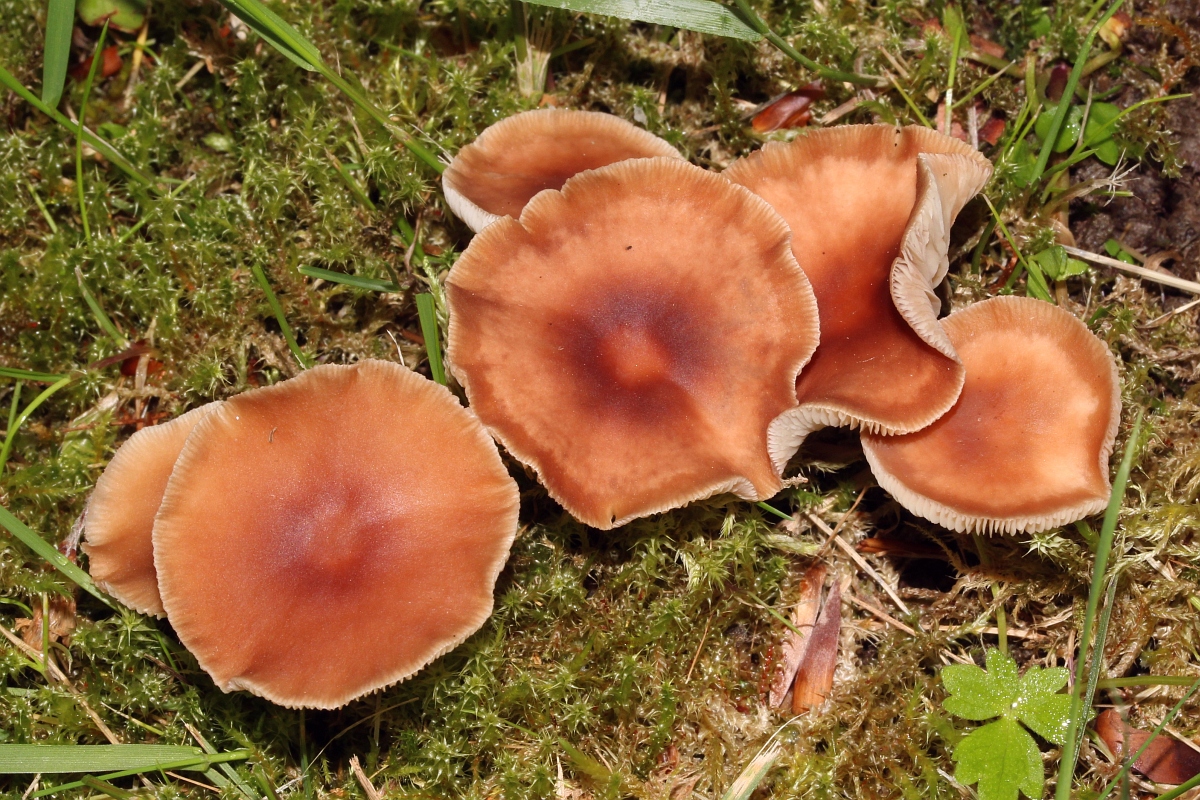
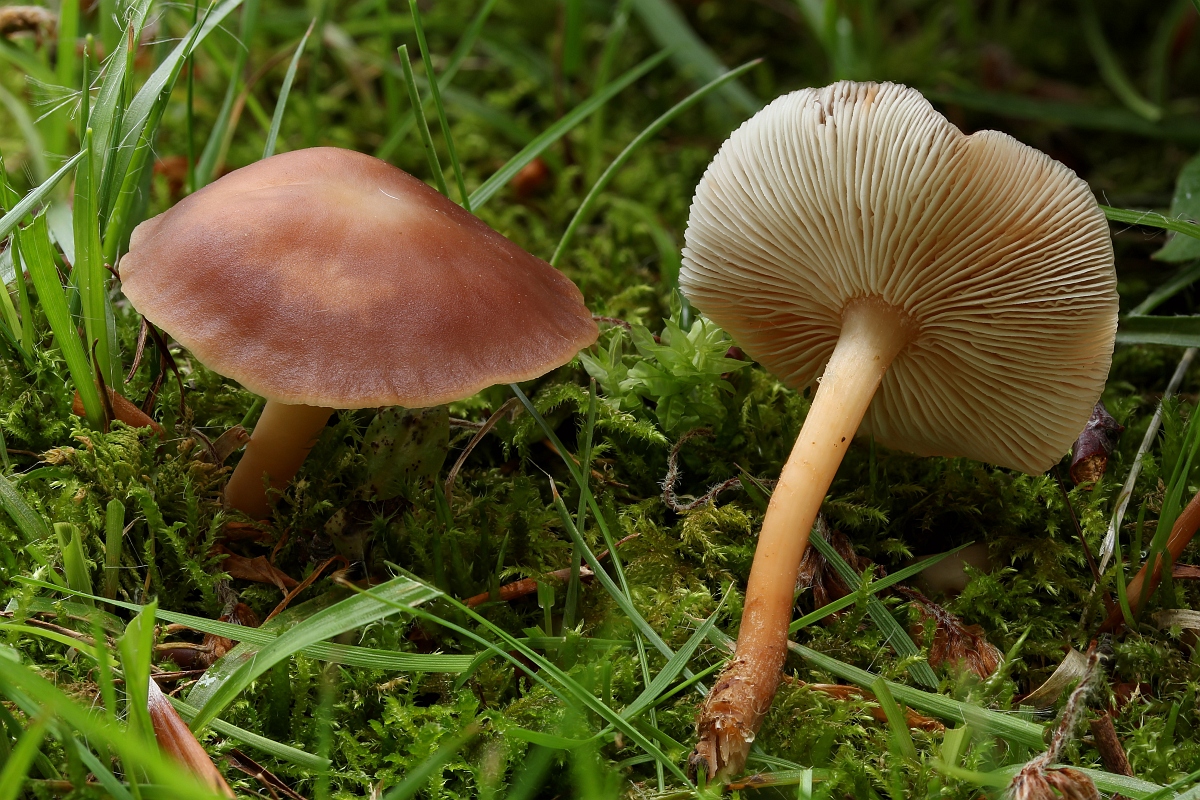
    Hier also der Gemeine Waldfreund-Rübling (Gymnopus dryophilus):

    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
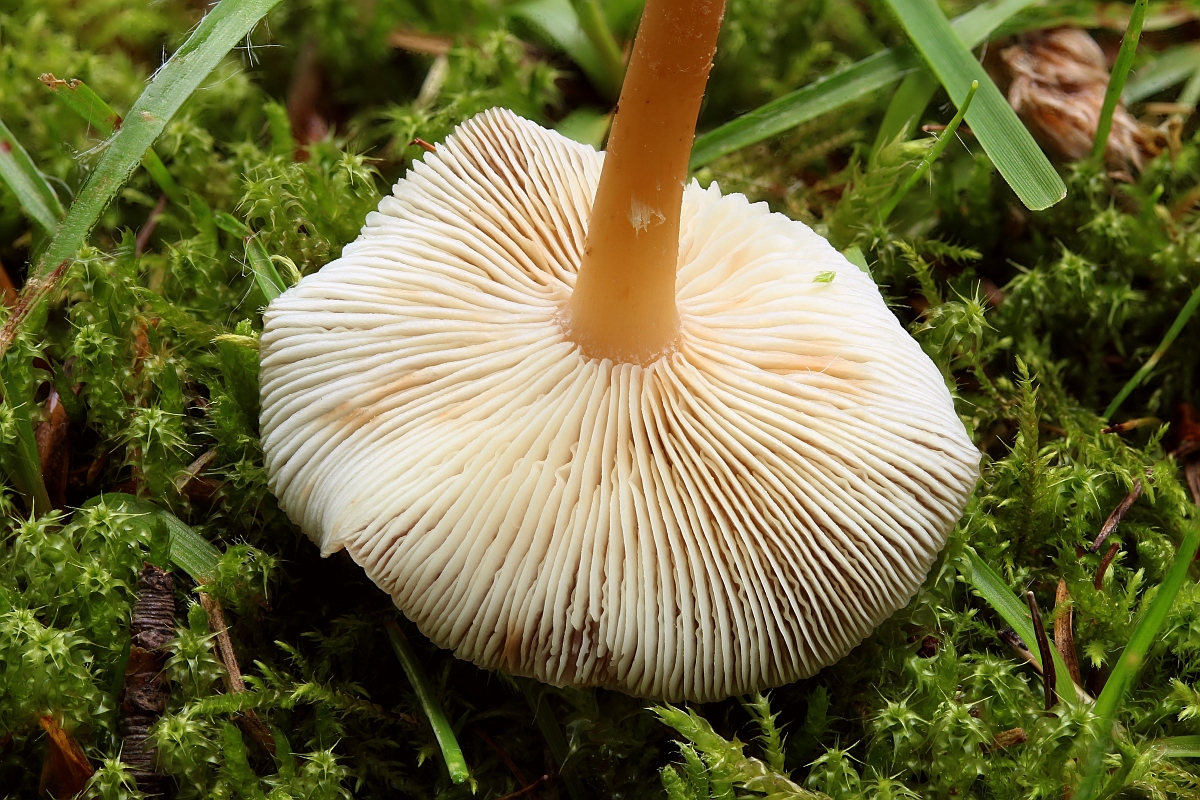
    [/font]
    [font="Arial"]Fundnummer: 2016-06-05-1528
    [/font]
    [font="Arial"]Fundort: ca. 550 müNN. ca. N50, O12, auf Rasen
    Fundzeit: 05.06.2016
    Wuchsform: einzeln
    Hutform:
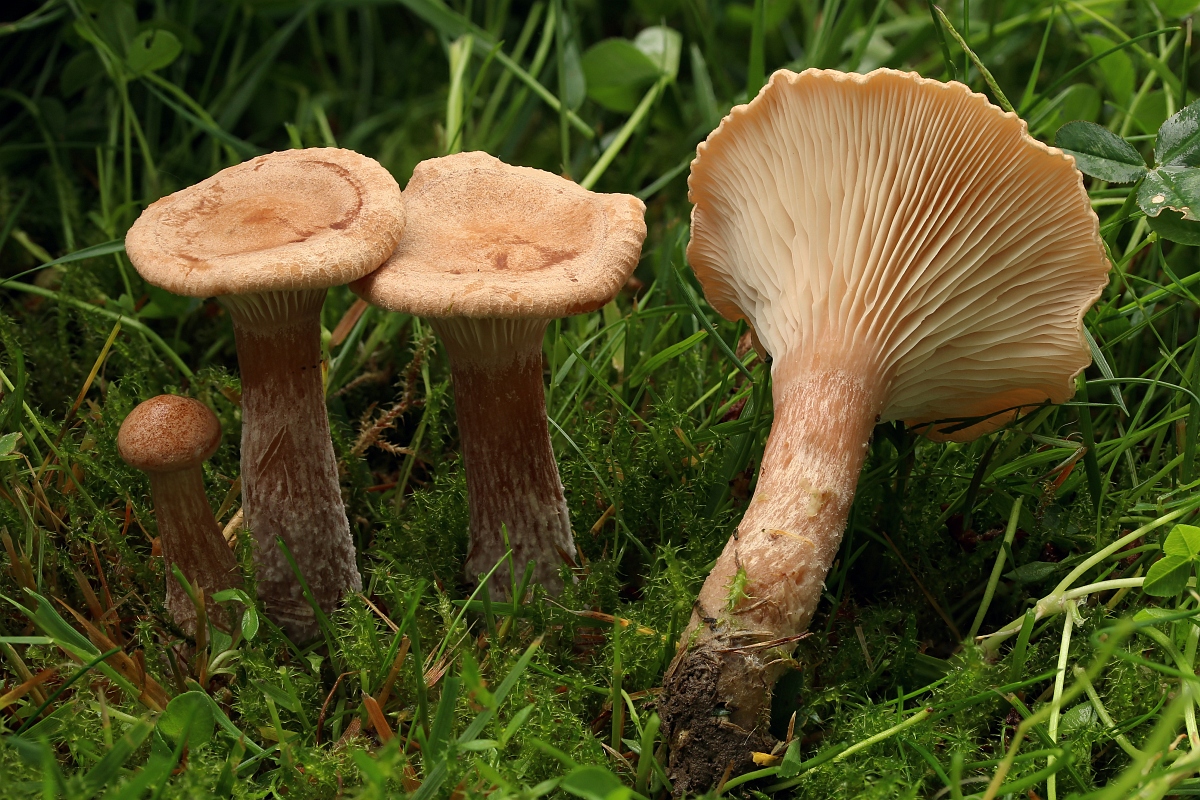
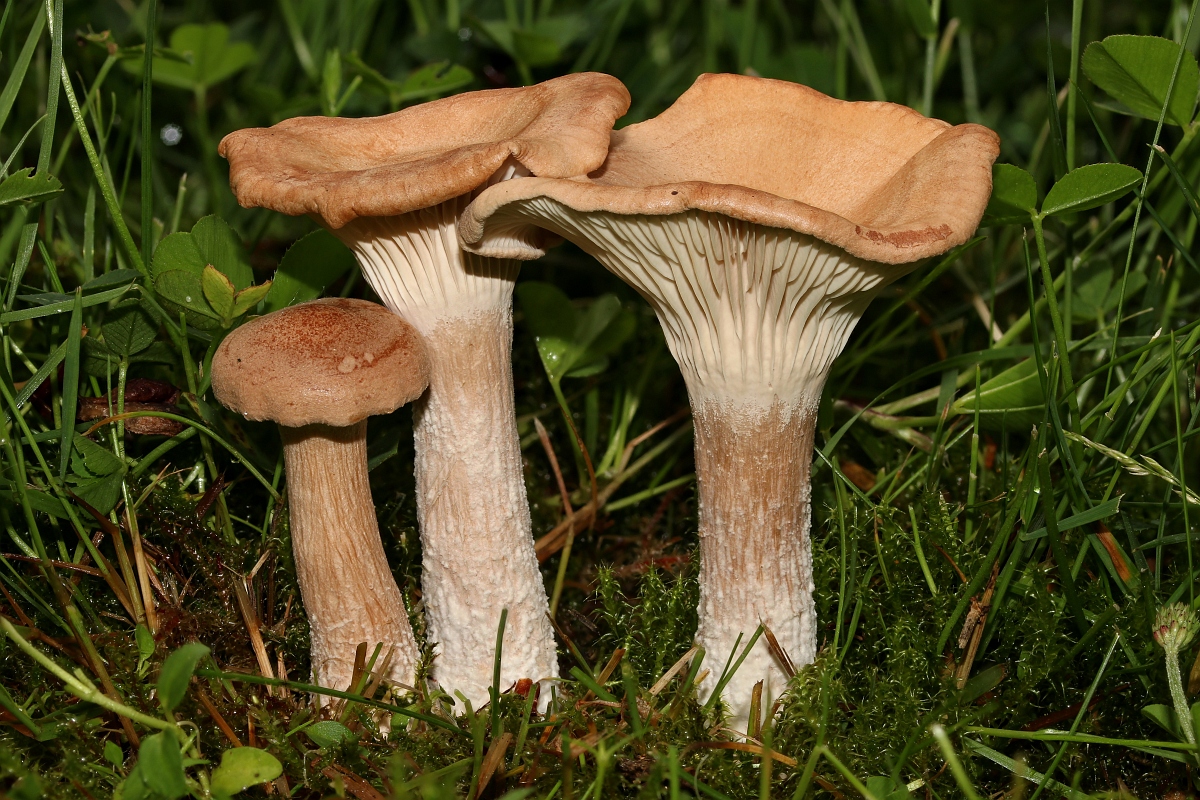
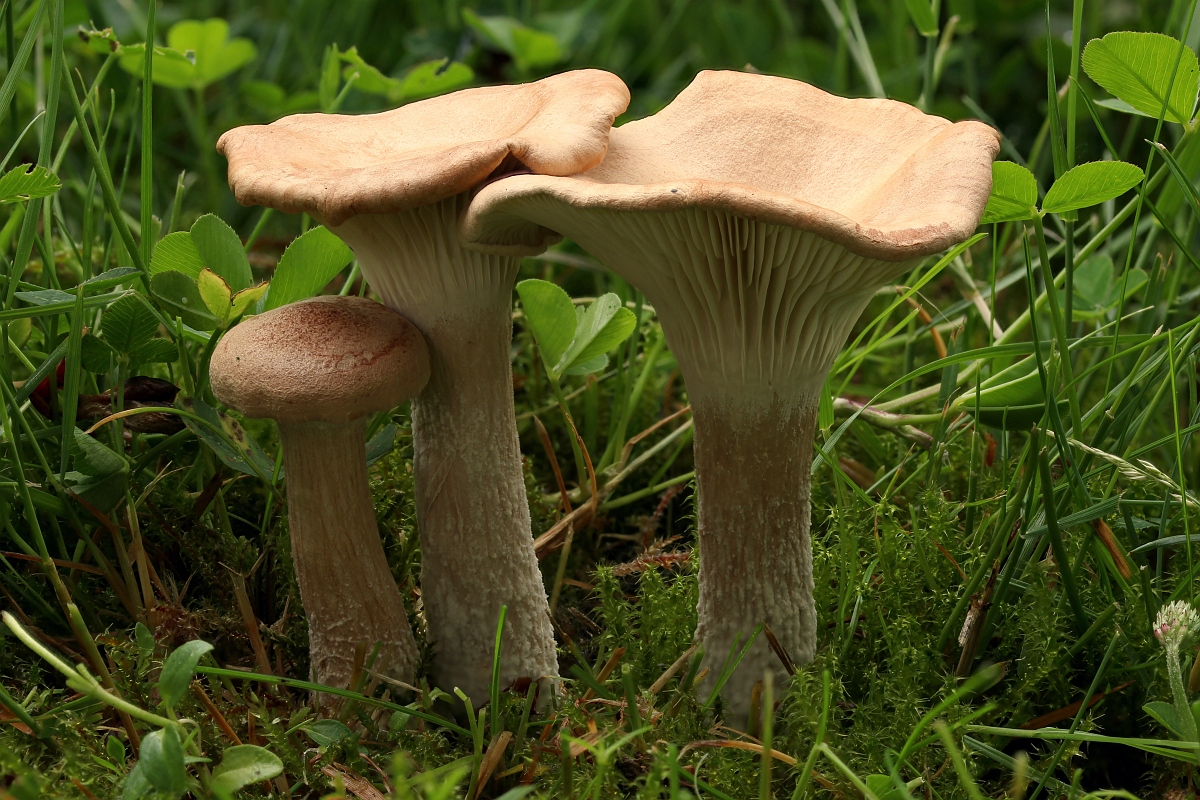
    trichterförmig
    Huthaut: orange-ocker, ringartig gezont, samtig
    Hygrophanität: nicht festgestellt
    Hutrand: wellig –“ fein und grob gewellt
    Lamellen: creme, mit Zwischenlamellen, mit Y-Gabeln
    Lamellenschneiden: ohne Besonderheiten

    Lamellen- Stielübergang:
    herablaufend, Fruchtschicht wie aufgeklebt angesetzt
    Stiel: Farbe außen orange-ocker
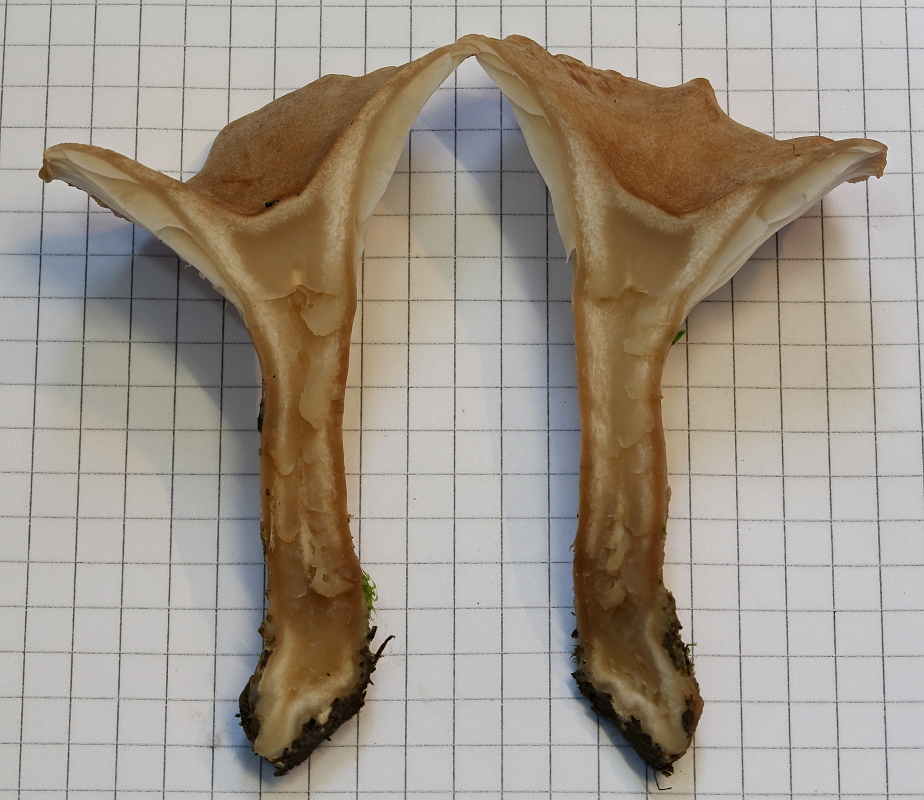
    , weißlich überfasert, innen beige bis weiß, innen voll
    Stielbasis:
    etwas zugespitzt (spitz wurzelnd)
    Fleisch: beige bis weiß
    Größe: Hutdurchmesser ca. 2-5 cm, Stiellänge 3-8 cm, Stieldurchmesser ca. 8 mm
    Sporenpulverfarbe: weiß
    Geruch: fruchtig duftend
    Geschmack: sehr gut pilzig, mild

    [/font]
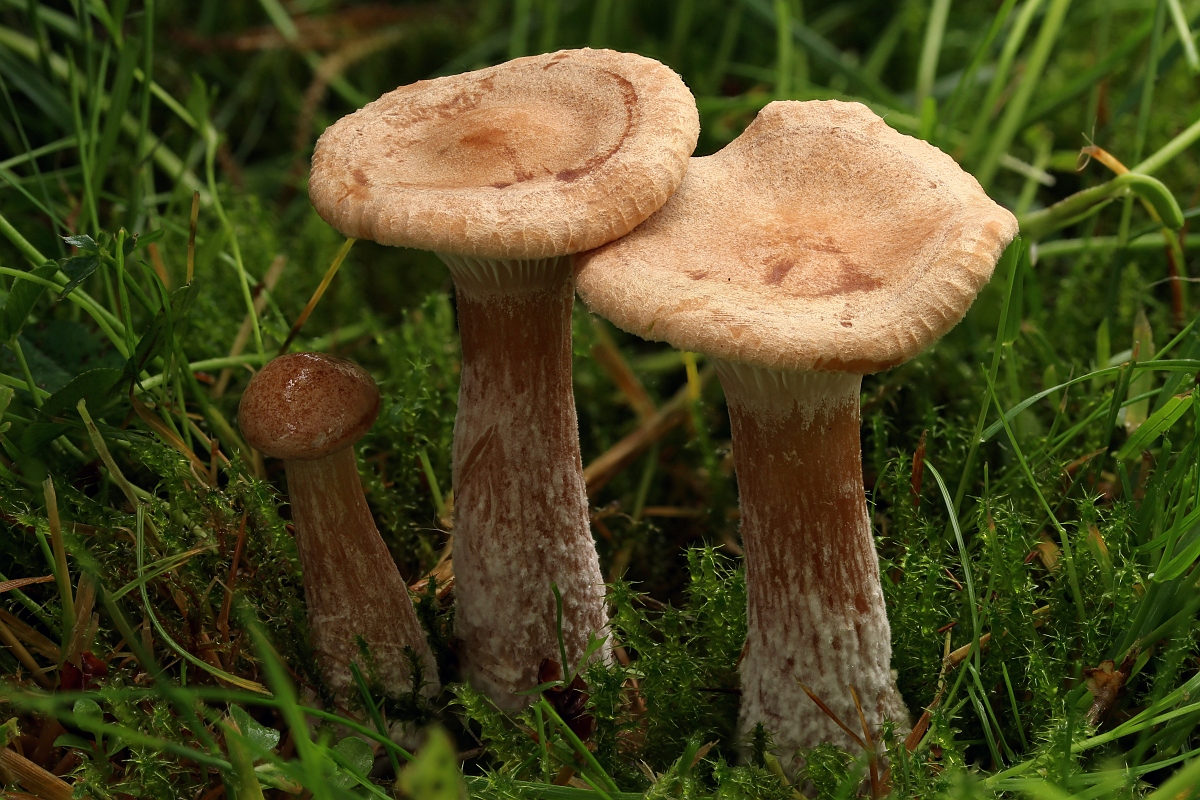
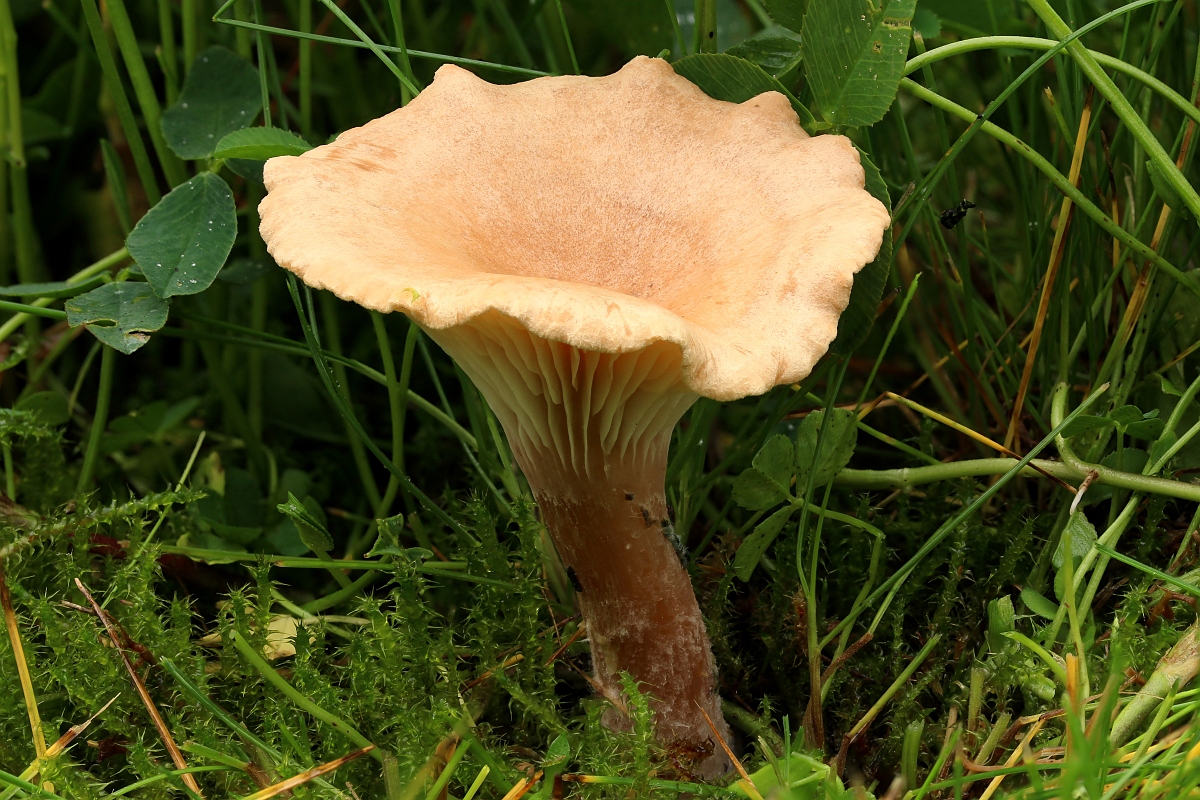
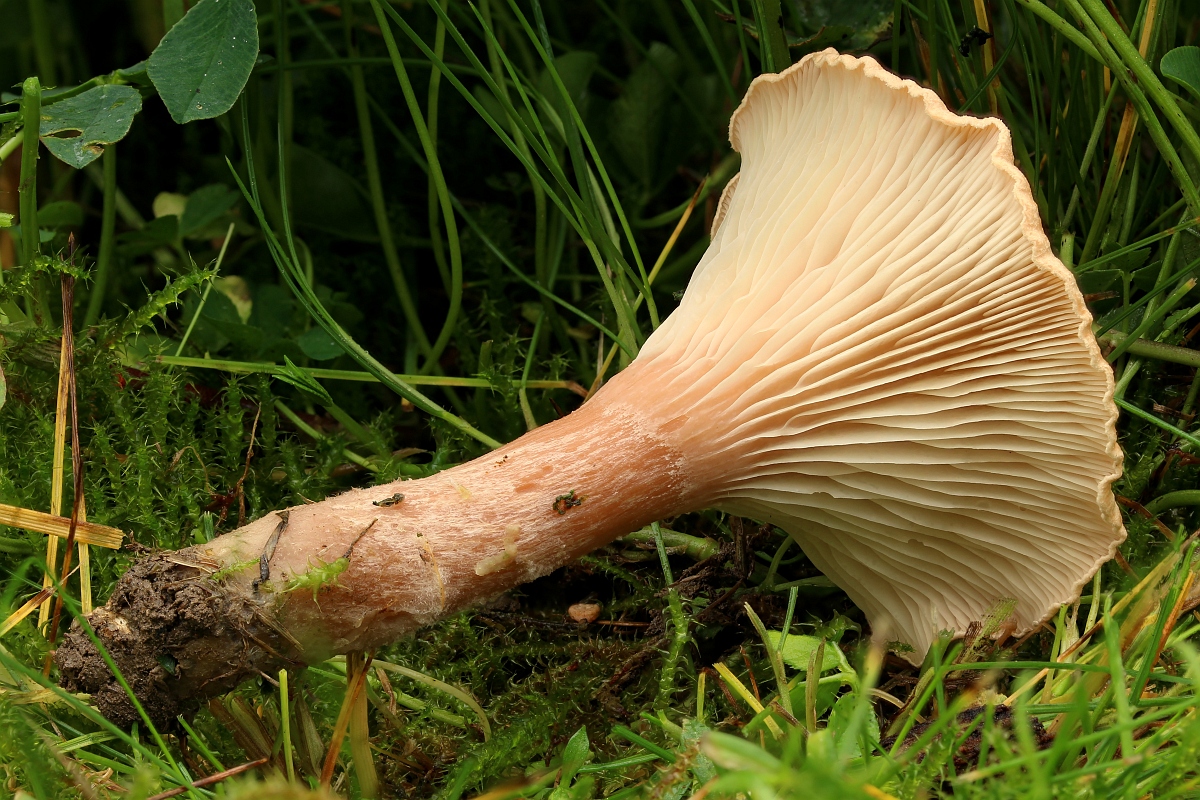
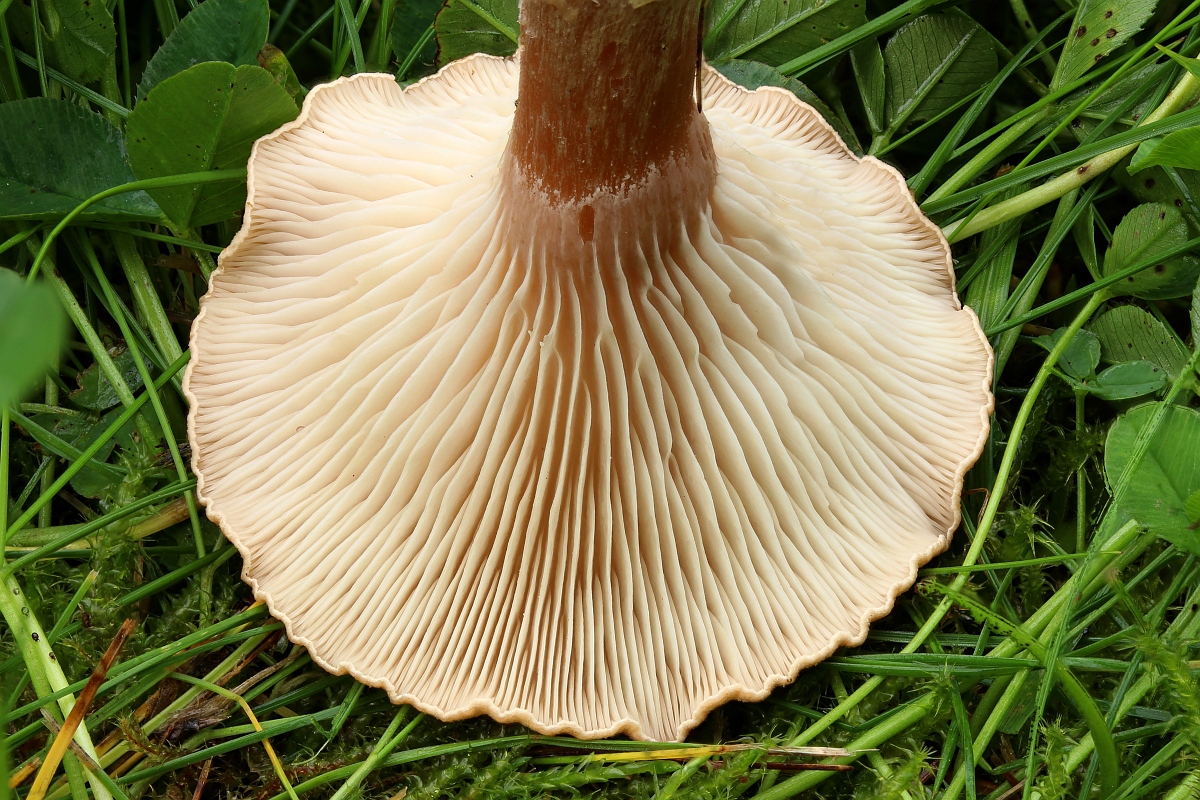
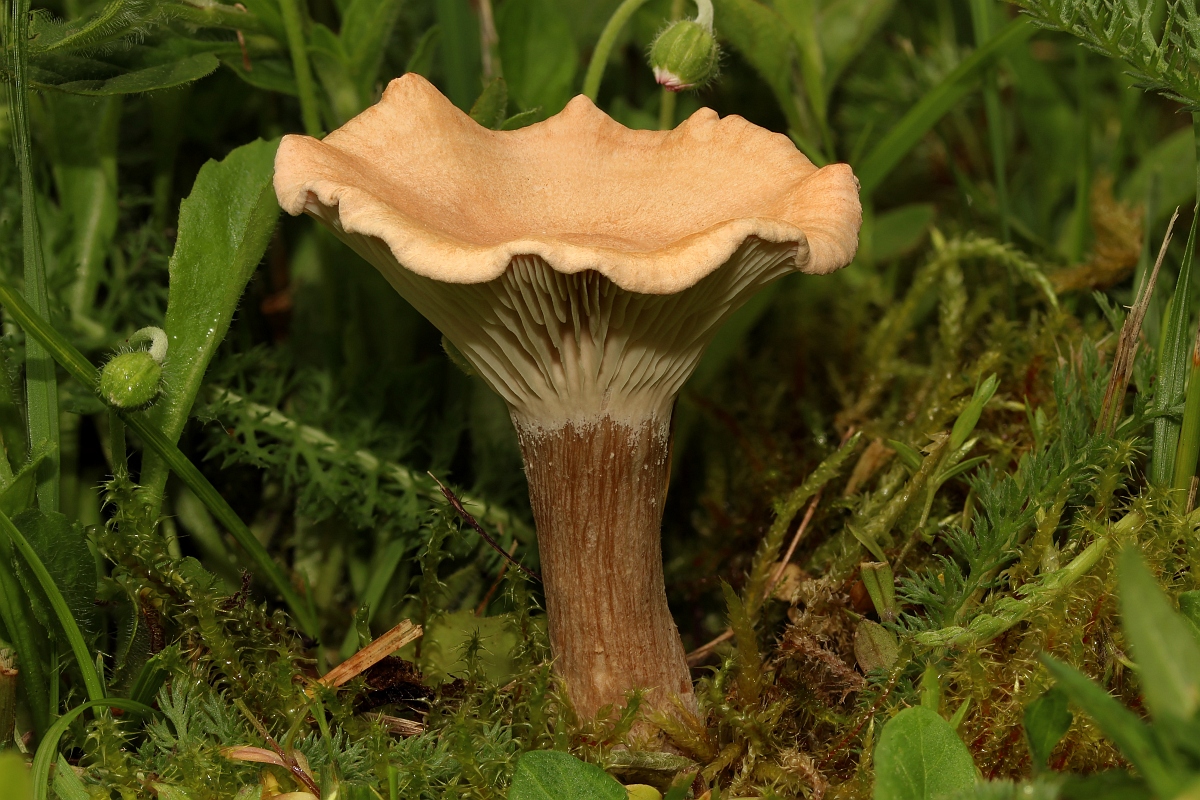
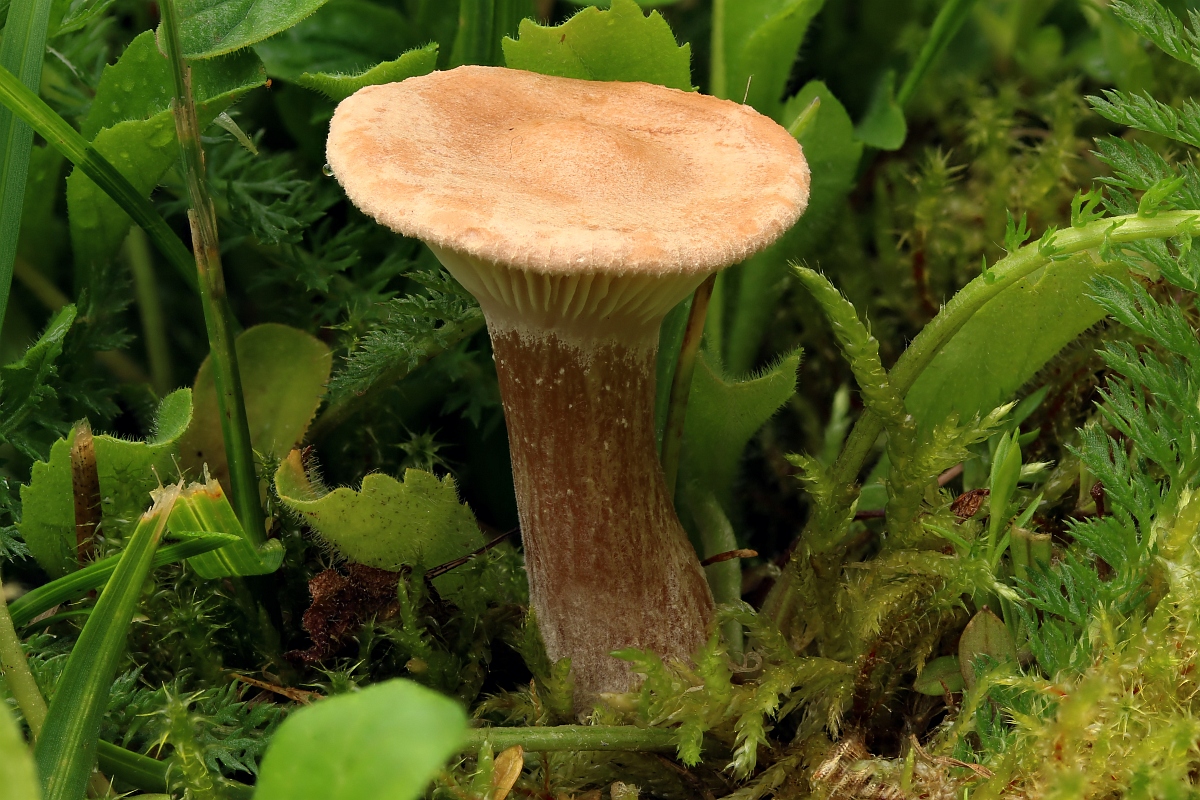
    [font="Arial"]Wegen der Stielfarbe und des welligen Hutrandes kann das nur der Kerbrandige Trichterling (Clitocybe costata) sein:
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Das war's für heute....
    Und wieder freue ich mich über Eure Kommentare und entschuldige mich dass ich letzter zeit so wenig im Forum aktiv war. Mein Baupfuschdrama will kein ende nehmen :(
    Beste Grüße
    Dieter
    [/font]

    [font="Arial"]Hallo Pilzfreunde,
    Der folgende Bericht handelt vo
    m Langstieligen Anis-Trichterling (Clitocybe fragrans), den ich hier im Forum vorstellte:

    https://www.pilzforum.eu/board…5-2016-3-fruehlings-arten

    Da er ungewöhnlich aussah, gerieten wir ins Zweifeln und ich beschloss eine Sequenzanalyse durchzuführen um meine Bestimmung zu bestätigen bzw. zu korrigierten.
    Das Ergebnis seht Ihr gleich.... ;) - viel Spaß damit.
    (Ich eröffnete einen neuen Thread um den anderen nicht zu sprengen)

    [/font]


    [font="Arial"]Fundnummer: 2016-05-26-1710
    [/font]
    [font="Arial"]Fundort: ca. 550 müNN. ca. N50, O12, unter Linde, Vogelkirsche, Ahorn
    Fundzeit: 26.05.2016
    Wuchsform: paarweise
    Hutform:
    jung: konvex, leichter Buckel, alt: Zentrum stark vertieft
    Huthaut: jung: braun, alt: Zentrum braun, nach außen hin heller (creme) werdend
    Hygrophanität: ja
    Hutrand: jung: eingerollt, weiß, alt: kantig, weiß
    Lamellen: creme, mit Zwischenlamellen, mit Y-Gabeln
    Lamellenschneiden: ohne Besonderheiten

    Lamellen-Stielübergang:
    jung: gerade angewachsen, alt: etwas herablaufend
    Stiel: bräunlich
    , weiß bereift, wattig ausgestopft
    Stielbasis:
    verdickt und rund, stark myzelfilzig
    Fleisch: beige
    , im Schnitt etwas bräunend
    Größe: Hutdurchmesser ca. 1-2,5 cm, Stiellänge 2-5 cm, Stieldurchmesser ca. 3-4 mm
    Sporenpulverfarbe: gab kein Sporenpulver ab
    Geruch: jung: neutral, alt: gut fruchtig und pilzig und minimal nach Anis
    Geschmack: nicht probiert

    [/font]
    [font="Arial"]Mikrodaten:

    HDS:
    Zellen septiert, meist zylindrisch, mit ein paar angeschwollenen Segmenten, Enden meist verjüngt, aber auch verdickt (selten)
    Durchmesser ohne Anschwellungen gemessen:

    (6.9) 7.7 - 11.5 (13.6) µm
    N = 18
    Me = 9.7 µm
    Anschwellungen: bis 22 µm

    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Cheilos:
    (13.7) 13.71 - 21.7 (23.2) x (3.3) 3.7 - 5.1 (6.3) µm
    Q = (2.2) 3.7 - 4.6 (5) ; N = 6
    Me = 17.2 x 4.5 µm ; Qe = 3.9

    Pleurozystiden:
    keine gefunden


    [/font]
    [font="Arial"]Basidolen und Basidien:
    4-sporig und 2-sporig
    (19.7) 20.7 - 28 (29) x (5.4) 5.6 - 6.4 (7) µm
    Q = (3.1) 3.3 - 5 (5.4) ; N = 17
    Me = 24.7 x 6.1 µm ; Qe = 4.1


    [/font]
    [font="Arial"]Sporen:
    (6.2) 6.3 - 7.2 (8.1) x (3.6) 3.7 - 4.2 (4.4) µm

    Q = (1.6) 1.61 - 1.85 (1.9) ; N = 34
    V = (45) 48 - 70 (78) µm ³
    Me = 6.8 x 4 µm ; Qe = 1.7 ; Ve = 57 µm ³


    [/font]
    [font="Arial"]Tramahyphen in den Lamellen:
    mit Schnallen

    Stielhyphen:

    septiert, mit Schnallen
    (4.9) 5.1 - 8.1 (10.5) µm
    N = 12
    Me = 6.5 µm


    [/font]
    [font="Arial"]Gröger-Schlüsselung:
    [/font]
    [font="Arial"]A* > B > B* > D > D* > E > Option 1: Teilschlüssel a > 1 > 1b > 2 > 2a > 3 > 3b > 5 > 5b > 11 > Sackgasse
    [/font]
    [font="Arial"]A* > B > B* > D > D* > E > Option 2: E* > F > F* > H > H* > Teilschlüssel c > 1 > 1b > 8 > 8b > 9 > 9a > 10 > 10a > 11 > 11b > Clitocybe fragrans
    Verglichen mit verschiedener Literatur - das passt!

    Allerdings kamen folgende berechtigte Einwände:
    - Karl erkannte dass in der Gattung keine echte Cheilozystiden zu finden sind. OK, es könnte sich bei den Elementen um Basidolen handeln
    - Karl erkannte dass die bereifte Steilspitze nicht zu Clitocybe fragans passt. OK; aber bereift waren nur die sehr jungen Exemplare.
    - Die unglatten Sporen passen nicht so recht.
    - Matthias meinte es könnte auch Gattung Rhodocybe sein - hier hatten wir jedoch keinen gefunden der passt.
     
    Es blieb nichts anderes übrig als den Pilz zu sequenzieren.
    Diesmal waren die Rohdaten sehr gut:

    [/font]
    [font="Arial"]Die Confidence Scores waren durchweg sehr gut:

    Nur am Anfang und am Ende sollte man einen Blich auf die Daten legen und ggf. nachkorrigieren.

    [/font]
    [font="Arial"]Vorab-Prüfung der Gattung mit Blast:
    Bei einer solch guten Sequenz kann man ohne weiteres erst mal die Gattung verifizieren.
    Ganz klar landete ich über Blast bei Clitocybe.

    Manualles Bascalling über Divergence Map:;
    Zunächst führte ich die Sequenzkorrektur durch. Dazu erstellte ich eine Divergence Map (hier ein Auszug):

    Es waren nur 3 Basen zu korrigieren.

    Blast Abfrage, Unite Abfrage:
    Mit dieser bereinigten Sequenz führte ich die Blast-Abfrage durch.
    Die Gattung Clitocybe ist in der NCBI Datenbank leider unvollständig und fehlerhaft abgebildet.
    Es gibt ähnliche Pilze für meinen fund, jedoch leider keinen Treffer.
    Ein mir bekannter Sequenzierer hat eine Sequenz-Sammlung, in seiner Datenbank sind 2 nahe Treffer zu finden.
    Clitocybe fragrans (100% Identidät) und Clitocybe obsoleta (100% Identidät).
    Die beiden Arten sind durch die ITS-Region der DNA nicht unterscheidbar, jedoch durch Morphologie & Mikroskopie.
    Deshalb nahm ich C. obsoleta informativ mit in die Recherche auf, obwohl er morphologisch bereits ausscheidet.
    Clitocybe obsoleta ist in der NCBI Datenbank nicht vorhanden.
    Für Clitocybe fragrans gibt es 4 Einträge in der NCBI Datenbank. 2 Davon dürften Fehlbestimmungen sein.
    Bei Unite gibt es 5 Einträge für Clitocybe fragrans und ebenfalls keine Einträge für Clitocybe fragrans.

    Phylogenetische Analyse:
    Aus dieser Sequenz-Sammlung erstellte ich ein Phylogramm mit folgendem Ergebnis:

    [/font]


    [font="Arial"]Distance Map:
    Die Abstandswerte habe ich nicht in das Phylogramm eingeblendet da es sonst zu unübersichtlich wird.
    Dazu erstellte ich eine Distance Map - diese sieht so aus:

    Das bedeutet: C. obsoleta deckt sich 100% mit meiner Sequenz, jedoch nur in der ITS-Region, scheidet aber morphologisch aus.
    Mein Fund deckt sich 99-100% mit den C. fragrans-Sequenzen aus den unite- und NCBI-Datenbanken (Ausnahme: die beiden vermutlich fehlbestimmten).
    Er ist somit molekularbiologisch bestätigt.

    Damit bleibt es der Langstielige Anis-Trichterling (Clitocybe fragrans):

    jung:

    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]alt:

    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Beste Grüße
    Dieter
    [/font]

    Hallo Andreas,
    danke für die Fragen. In Kürze...


    Allerdings habe ich gelernt, dass man dabei seeehr zurückhaltend sein soll, und im Zweifelsfall lieber lassen soll oder mal auf Y, M, K etc. korrigiert, also auf die Doppel- oder Triple-Codes.


    Ja, das ist richtig, wenn man mit der Sequenz suchen gehen will.
    Unnötig wenn es in dem Such-pool keine Sequenz gibt bei dem die nicht passende Base vorkommt.


    Ferner habe ich beigebracht bekommen, dass man die Bereinigung vorher macht, bevor man aligniert. Gerade eben um sich nicht beeinflussen zu lassen.


    Ja, das passt. Siehe Beispiel 1. Bei Beispiel 2 kommt aber das gleiche raus (natürlich schnell mal probiert). Genau das wollte ich damit sagen.
    Du hast wahrscheinlcih das Test-Alignement verwechselt mit dem ich prüfte ob es bivelus überhaupt sein kann.
    Das kann man auch ohne jede Korrektur vorher mal machen.


    Bei deinem oben gezeigten Beispiel 2, beim Chromatogramm, zeigst Du dass Du manuel die Base von A (grüne Bande) auf G (schwarze Bande) änderst. Warum tust Du das - die grüne Bande ist die stärkere,


    Ganz kurz und schnell vorab: die Höhe des Ausschlages zeigt an dieser stelle nicht an, ob es ein A oder ein G ist.
    Man betrachtet 3 Dinge:
    a) welche Ausschläge gibt es (nicht wie hoch sind sie)
    b) wie hoch ist die Confidence score an der stelle?
    c) Welche Basen sind im Vergleichspool an dieser Stelle vorhanden.
    Dann ändert man auch nicht einfach so auf G, sondern entscheidet ob man auf G ändern muss, auf A lassen muss, oder aber auf R setzen muss.


    und wenn du schon änderst, dann doch am ehesten in einen Doppelpeak R (R bedeutet A oder G).


    Richtig, wenn man mit der Sequenz suchen gehen will ODER wenn im suchpool welche mit A, G oder R vorkommen.
    Unnötig wenn es in dem Such-pool keine Sequenz gibt bei dem die nicht passende Base vorkommt UND wenn kein weiterer Ausschlag vorhanden ist.
    Zeige ich mal in einem weiteren Beispiel wenn ich Zeit hab.


    Und wenn Du diesen Peak an der Stelle von A auf G abänderst, warum änderst Du dann nicht den Peak davor von A auf C?


    Weil aus eben der genannten Prüfung wie oben beschrieben folgt dass nur A stimmen kann.
    Wenn aus der Prüfung folgt, dass nur C stimmen kann, hätte ich sie auf C gelassen.
    Wenn - was auch vorkommt beide möglich sein können dann ändere ich auf M.


    Und noch mal ein paar Peaks davor ist dieselbe Doppelspitze wie deine korrigierte - warum korrigierst Du da nicht?


    Weil aus eben der genannten Prüfung wie oben beschrieben folgt dass nue A stimmen kann.


    Ich sehe dass die Thematik gut ankommt.
    Ich werde wenn Zeit ist mal auch die von Andreas beschriebene Methode hier vorstellen falls ein Pilzchen dabei ist wo diese nötig ist.


    Ich glaube dass diese starke Korrektur mit bereits vorgefasster Meinung nicht statthaft ist, gefühlsmäßig. Aber wie gesagt kenne ich mich nicht wirklich damit aus.


    Ja, das verstehe ich. Würde mir auch so erscheinen.
    Es ist anders:
    Die komplette Divergence Map enthält einige hundert oder wenn's sein muss auch tausend Einträge - welche dann numerisch ausgewertet werden (da optisch gar nicht mehr erfassbar) - das ist mit einer schnellen (ungenauen) manuellen Korrektur wie Sie Dir bekannt ist (also auf dual, triple oder quad ändern) nicht vergleichbar. Was nicht heißt dass diese ungenaue Korrektur fals ist - sie ist eben nur ungenauer.


    Die gekniete und spitz auslaufende Stielbasis, der steife weiße Stiel ohne sichtbare Velumreste - das sind ganz eindeutige Kennzeichen der Sektion Duracini nach traditioneller Umgrenzung (Moser z. B.). In Funga Nordica wurden einige Arten der bisherigen Duracini zu den Acetosi gestellt, und in der Tat sind da die Übergänge zumindest morphologisch nicht immer klar. Aber dein Pilz ist auf jeden Fall unter denen zu finden, die in Moser in der Sektion Duracini aufgeführt sind oder ein naher Verwandter dieser Arten.


    Danke für den Hinweis, das schaue ich mir noch an (dauert)
    Beste Grüße
    Dieter

    Vielen Dank erst mal an alle,
    Danke auch für die Hinweise zu dem - je sagen wir mal - incisus-Sequenz-ähnlichen.
    Das werde ich mir nochmal genauer ansehen - wird aber etwas dauern.
    Von dem Pilz habe ich Euch noch Bilder vorenthalten - er ist sehr variabel.
    Ist auch völlig glatt ohne Schuppen zu finden gewesen (wenn nass und älter) - und passt (mit den starken schuppen wenn jung) eben auf die originalbeschreibung von 1801. @Pablo, nein die Farben waren schon so wie ich schrieb - und du wirst an den anderen Kollektionen sehen wie gut er auf die Beschreibeung passt - dazu aber später.
    Duracini schaue ich mir nochmal an, obwohl schon getan, schloss ich aber anhand der sicheren Basen schon aus.
    Vielleicht weiß ja jemand noch mehr über dieses Mysterium.
    Solange setze ich den Pilz nochmal zurück auf "Cortinarius spec.".
    Wenn Zeit ist nache ich nochmal eine Rückwärts-Sequenzierung - denn den dürfen wir ja so nicht stehen lassen ;)
    Beste Grüße
    Dieter

    Hi,
    ich hatte in Zusammenarbeit mit Andreas hier einmal versucht alle bekannten sequenzen der Spadis und nahe stehenden Arten zusammenzutragen und in einem Phylogram zu vereinen:
    https://www.pilzforum.eu/board…a-lasset-uns-sequenzieren
    Dieses ist inzwischen schon wieder nicht mehr ganz aktuell, da ich daran noch etwas gebastelt habe, aber ich denke das aktuellste was momentan in Net zu finden ist.
    Ich und Matthias haben dieses Jahr bereits wieder 2 mal Spadis gefunden.
    Mal sehen was dabei wieder raus kommt.
    Beste Grüße
    Dieter

    Hallo Pilzfreunde,


    in diesem kleinen Bericht möchte ich ein paar neue Erfahrungen zum Sequenzieren vorstellen.
    Diesmal geht es z.B. um "Masking", "manuelles Basecalling" und Cortinarien.
    Inzwischen habe ich einige Sachen vertieft und Dinge gelernt die den einen oder anderen Pilzfreund (eher den Praktiker als den Theoretiker) vielleicht nützlich sein können.
    Diese Bericht baut auf diese 2 Berichte auf:

    Tiefer Einblick in ein Stockschwämmchen - Pilzbestimmung u. Bestimmungshilfe - Pilzforum.eu
    Psathyrella - lasset uns sequenzieren ;-) - Pilzbestimmung u. Bestimmungshilfe - Pilzforum.eu
    Diese beiden solltet Ihr vorher mal gelesen haben wenn Euch das Thema interessiert.
    Ich beschreibe alles wie immer an 2 echten Praxisbeispielen.

    Praxisbeispiel 1:

    Ihr erinnert Euch vielleicht an den tollen, seiner Zeit aber völlig unklaren Cortinarius-Fund vom 27.12.2015:

    Fundnummer: 2015-12-27-0923

    Makrodaten:
    Fundort: ca. 550 müNN. ca. N50, O12, bei verschiedenen Laubbäumen
    Fundzeit: 27.12.2015
    Wuchsform: gesellig, teils büschelig
    Hutform:
    konvex, teilweise mit leichtem Buckel
    Huthaut: weiß geschuppt (befasert) auf orangem Grund
    Hygrophanität: ja
    Hutrand: weiß, jung: etwas befilzt, alt: nach oben gebogen
    Lamellen: entfernt stehend, jung: orangecreme, alt: braunorange, mit Zwischenlamellen, mit Y-Gabelungen
    Lamellenschneiden: etwas weißlich
    Lamellen-Stielübergang:
    ausgebuchtet und leicht herablaufend
    Stiel: weiß, minimal braun befasert im oberen Bereich, längsfaserig, wattig ausgestopft
    Velum-Farbe: weiß
    Stielbasis:
    sehr spitz
    Fleisch: creme, etwas orange anlaufend im Längsschnitt, deutlich orange anlaufend im Stiel-Querschnitt und zwar in der Stielrinde mehr als im Zentrum
    Größe: Hutdurchmesser ca. 3-5 cm, Stiellänge 4-7 cm, Stieldurchmesser ca. 10 mm
    Sporenpulverfarbe: Pantone 160U = ████
    Geruch: erdig, zerrieben pilzig nach Anis-Champignon
    Geschmack: nicht probiert
    Exsikkat-Farben: Huthaut: hellbraun, Lamellen: orangebraun, Stiel: beige, Fleisch: beige

    Mikrodaten:
    Sporen:
    leicht gewarzt, braun, dickwandig, etwas dextrinoid (weinrot-braun) in Melzer–™s
    (6.9) 8 - 9.1 (9.6) x (4.4) 5 - 5.9 (6.7) µm
    Q = (1.3) 1.4 - 1.6 (1.8) ; N = 57
    V = (70) 109 - 162 (215) µm ³
    Me = 8.4 x 5.6 µm ; Qe = 1.5 ; Ve = 138 µm
    ³
    mush-11934.jpg

    mush-11935.jpg

    Schlüsselt man mit FN kommt man auf den Birken-Gürtelfuß (Cortinarius bivelus) - der es mit viel Fantasie sein hätte können (ist es aber nicht).
    Diesen äußerst merkwürdigen, interessanten Fund musste ich natürlich weiter untersuchen.
    Er wanderte also in den Sequenzierautomaten. Das Ergebnis war jedoch sehr ernüchternd.

    Die Rohdaten-Qualitätsbewertung:
    Die Rohdaten sahen wirklich schlimm aus:
    mush-12224.gif
    An den stark abfallenden Amplituden (hier in Farbe cyan eingezeichnet) erkennt man, dass das Signal schwach und verrauscht war.
    Der Rauschabstand, also das "C über N" (bedeute Signal über Rauschen) ist nicht gut, vor allem an Anfang (in den Rohdaten das Ende) der Sequenz.
    Ein gutes Signal (einer anderen Sequenz) schaut z.B. so aus:
    mush-12225.gif

    Eine solch schlechte Sequenz wie bei diesem Fund kann verschiedene Ursachen haben.
    Z.B. zu niedrige DNA-Template Konzentration, falscher Primer, unvollständige Protein-Entfernung, chemische Verschmutzung der Probe, etc.
    Man kann nun
    a) das Problem technisch lösen, indem man eine neue Probe mit höherem Aufwand neu sequenziert oder
    b) eine Rückwärts-Sequenzierung durchführt, oder
    c) versucht mit den brauchbaren Stücken der Sequenz trotzdem eine Bestimmung oder Bestätigung der Bestimmung durchzuführen.

    In der Regel geht man den Weg c) --> b) --> a) - was ich hier nun tat.
    Sehen wir uns nun die gefilterten und komprimierten Daten im vorderen (in den Rohdaten hinteren) Bereich an:
    mush-12226.gif
    Wir erkennen, dass die Sequenz voller so genannter "Doublepeaks" ist - gelb markiert.
    Confidence Scores:
    Die Confidence-Scores, das sind Qualitäts-Werte (das sind die Balken oben an der gestrichelten cyan-farbenen Linie) sind schlecht.
    Ist ein Balken unter der Cyan-Linie bedeutet das in der Software Finch TV zum Beispiel: schlecht, über der Cyan-Linie: gut.
    Die DNA-Software berechnet die Confidence-Score: Q = -10 * log10(Fehlerwahrscheinlichkeit)
    Beispiele:
    Bei einer Fehlerwahrscheinlichkeit von 1 zu 10 (=0,1) ist die Qualität Q = 10.
    Bei einer Fehlerwahrscheinlichkeit von 1 zu 100 (=0,01) ist die Qualität Q = 20. --> das ist die z.B. Cyan-Linen-Grenze in der Software "Finch TV"
    Bei einer Fehlerwahrscheinlichkeit von 1 zu 1000 (=0,001) ist die Qualität Q = 30.
    Bei einer Fehlerwahrscheinlichkeit von 1 zu 10000 (=0,0001) ist die Qualität Q = 40.
    Usw. Es wird hier klar dass es 100% Fehlerfreiheit zwar niemals geben kann, Aber bei einer guten Sequenz erreicht man Confidence-Scores von über 50. Das heißt die Fehlerwahrscheinlichkeit ist 1 zu 100000 - und damit ist ein Fehler sehr unwahrscheinlich.

    Das Confidence Score Diagram:
    Bei solch schlechten Rohdaten wie bei diesem Fund muss man sich zunächst ein CSD machen (CSD = Confidence Score Diagram)
    Es stellt die mittlere Qualität über die Basen dar und sieht so aus:
    mush-12237.gif
    Wir sehen dass die Qualität nur zwischen BP 20 und BP 500 OK ist, der Rest sollte nicht für die erste Grobanalyse herangezogen werden.
    Wie wir hier weiter kommen sehen wir nun...

    Zurück zu unserer Sequenz:

    Der vordere und hintere Bereich der Sequenz ist also quasi unbrauchbar. Mit diesen Bereichen der Sequenz ist quasi nichts anzufangen.
    Der mittlere Bereich der Sequenz zeigt jedoch einigermaßen gute Confidence-Scores.
    Insgesamt betrachtet ist die Sequenz so dermaßen schlecht, dass eine BLAST-Abfrage ohne jede Handarbeit gar keinen Sinn macht.
    Tut man das trotzdem, landet man bei Cortinarius und bei Hebeloma jedoch gibt es logischer weise keine gute Übereinstimmung zu irgend einer Art.
    Man kann damit also NUR die Gattung Cortinarius oder Hebeloma bestätigen.

    Aber: Da ich die makroskopischen und mikroskopischen Daten kenne und eine Vorab-Bestimmung durchgeführt habe, besteht nun die Möglichkeit, Sequenzen der vorbestimmten Art Birken-Gürtelfuß (Cortinarius bivelus) und nahe stehenden Verwandten Arten mit brauchbaren Teilstücken der Sequenz zu vergleichen. Ergibt sich hieraus eine Eindeutigkeit - dann ist die Art bestätig oder eben bestätigt dass es sie nicht sein kann.
    In jedem Fall jedoch wird klar werden ob sich Schritt b) überhaupt rentiert, denn es ist ja möglich dass überhaupt keine Vergleichssequenz vorhanden ist.
    Man sieht hier wieder einmal wie wichtig es ist eine makroskopische / mikroskopische Bestimmung vor der Sequenzierung zu machen.
    Eine sehr gute Sequenz für den Vergleich ist KX355542 (Cortinarius bivelus) aus Polen.
    Beim Vergleich stellt sich jedoch folgendes heraus (hie rein Ausschnitt):
    mush-12227.gif
    Vergleicht man die abweichenden Basen, erkennt man, dass sichere Basen teilweise auch nicht übereinstimmen und in meiner Sequenz DNA-Ketten sind die bei Coritnarius bivelus nicht vorhanden sind.
    Wir können also sicher davon ausgehen, dass es sich nicht um Cortinarius bivelus handelt.

    Sequence-Masking hilft weiter:
    Mit einer einfachen, recht schnellen Methode kann man noch etwas aus einer solch kaputten Sequenz machen.
    Man kann die eindeutigen Basenketten - z.B. die mit über Confidence-Scores 20 quasi "filtern", und die nicht eindeutigen als nicht eindeutig - also mit "N" kennzeichnen.
    Diesen Vorgang nennt man "Maskieren". Wie geht das?
    Zunächst sollte jede Sequenzierautomaten-Software die Confidence Score mit ausgeben und im .abi-File abspeichern.
    Dies kann man überprüfen im Informationsbereich des Files.
    Die Confidence Score kann auch nachträglich berechnet werden. Es gibt alternative Routinen die ein "besseres" Ergebnis als Standard-Berechnungen bringen.
    Z.B. gibt es eine alternative Berechnungsroutine in der DNA-Baser Software (keine Freeware).
    Zunächst wandelt man das Chromatogramm in ein fastq-File um. Wichtig dabei ist, dass es in einem definierten Format abgespeichert wird, welches sie Maskierungs-Software versteht.
    Ich verwende dazu das fastq-Sanger-Format.
    So sieht das original Sanger-File für meinen Pilz aus:

    [font="Courier New"]@mein_Fund[font="Courier New"]
    ACCCTGGATTTGAGGTCACATTGATAAAGGATTGTCCAAGTAAATGGACTGTTAGAAGCTAAACTTGTGCTTTACCGTCAATAGCGTAAATAGTTATCACACCAA
    TGAGCAGTAAACAAATTGTTTTGCTAATGTATTTTAGGAGAGCCGACCTCAAGAGAAAGAGTCCAGCAAAAACCCCCACATCCAACACTCGTCATGCAAAAAAGC
    CGAAAAGGGTTGATATATTAATGACACTCAAACAGGCATGCTCCTCGGAATACCAAGGAGCGCAAGGGGCGTTCAAAGATTCGATGATTCACTGAATTCTGCAAT
    TCACATTACTTATCGCATTTCGCTGCGTTCTTCATCGATGCGAGAGCCAAAAGATCCGTTGCTGAAAGTTGTATAAGTTTATAGGCACAAAGGCCTGTTTATTAC
    ATTCTATAAACATACATGGGGGTATATGAAAAACATAGACCTGGAAACGCAGGGAAAGACAAAAAATCATTCCTCAAACCTGAATCTGTAAGGAATTCAGAGAGA
    TATCCGGGTCTACAAAAGGTTCACGGGGGGAAATATAAAGATGACAAGGGTGCACATGCTCCCTAAAAAACCAGAAGAAACTCACCAGGTTAATTTCAAAAATGA
    TCCTTCCGCAGGTTCACCTACGAAAACCTTGTAACAACTTTAACTTCCTCAATTTGACCAGGA
    +
    %&&%/&&'>=(+587.-5*5F8D7NON0I87M7OOD7I7ODUN7DUDDNNNUNUUXUXXXXXXM5/51:UUNNNII57=D?ID7750:715/NUUNNUI55E??:
    05577D::UU:UUUN505IGD?515E--5DDJJ666::5-5BD=77UNNUG))5-E5505OUUU?UIXXUUNXXNNIUNNUNII?NII????F005NXXXUUNIN
    :DD::1NNLDD?DOOON=/5++-?C=D=IUUNUNM?=-05=DONNM5-?5?UUUUO655?DDIDDD651NNNDDNL//5?<5-5//7GB?=0:DNNNN==5NUIU
    UUUD?D?DMI?UUUNNNUUUU:/:DUUUIUUNIINUIINND=505GGG?5++::NUNUNN://1LI6LDD:1:UUNUU:/:HHK?::DUOIUIO:15C:1:707N
    UUDNUUUU505==J:00NNLDDDDUUIUXXUUUDDIOOOI::=6IF=D?F5F50D:1:UIXUUN5//:5((5/0:<:/:1005++007500C5((5055-5--00
    :006-75-6--/;HD5-A5<65:-5553-+---7/:D://1007;:/50+-5:<:+-5//:8--555D0-???DIINOL5+-85++6GDJ::/F;0055-++--5
    /7/5/:57::FF5--/5//:@5D=5/=:5055--770/D::0-/5/95,-.--+)-0A7-/-.


    Das sieht verwirrend aus - ist aber ganz einfach: Grün - das ist nichts anderes als die Sequenz wie in einem .fasta-File.
    Was dazu kommt sind die Confidence-Scores (blau) und zwar im ASCII-Format, sodass die Maskierungs-Software damit arbeiten kann.
    Damit geht man also nun in die Maskierungs-Software, und sagt ihr: Ersetze alle Basen, die schlechter als 20 sind mit "N".
    Ich verwende die Software "Fastq-Masker".
    Heraus kommt:
    [font="Courier New"]@mein_Fund-masked
    NNNNNNNNTTNNNGGNNNNNTTGATAANGGATTGTCCAAGTAAATGGACTGTTAGAAGCTAAACNNNNGCTTTACCNTCAATAGCNNAANNNGTTATCANNCCAA
    NNNGCAGTAAACAAANNNTTTTNNNANNNTATTTTAGGNNNGCCGACCTCANNNNANNNNGTCCAGCAAAAACCCCCACATCCAACACTCGTCNNNCAAAAAAGC
    CGAAANGGGTTGATATATNNNNNACACTCAAACAGGCNNNCTCCTCNNANTACCAAGNNGCGCAAGGNNCGTTCAANNNTTNNNNNATTCANTGAATTCTNCAAT
    TCACATTACTTATCGCATTTCGNTGCGTTCTTCATCGATGCGNNNGCCANNNGATCCGTTGNNNAAAGTTGNATAAGTTNATAGGCACAAAGGCCNNTTNATNAC
    ATTCTATANNNATACNNGGGGGTATATGAAAAACATAGACCTGGAAACGCNGNNAANGACAAAANNNCNNNNNNCAANCNNNNNNNNGNNNGNNNNNNNNNNNNN
    TNNCNGNNTNNNCAANNGNTTNANNNNNNNNNNTNTAANNNNNACANNNNNNCACNNNNNCCNNNNNANNCCAGAAGAANNNCNNNAGGTTANTTNNNNNNNNNN
    NCNNNCNGCAGGNNNNNNNACNAANNCCNNNNNNCANNTTTNNNNNCNNNNNNNNNNCCNNNN

    Ja, viel bleibt nicht übrig - das ist klar.
    Da die Roh-Sequenz als reversed complement vorlag, muss ich daraus das reversed complement bilden:[font="Courier New"]
    @mein_Fund-masked_rev_komp
    GAGGAGNNNGCCTGTTTGAGTGTNNNNNATATATCAACCCNTTTCGGCTTTTTTGNNNGACGAGTGTTGGATGTGGGGGTTTTTGCTGGACNNNNTNNNNTGAGG
    TCGGCNNNCCTAAAATANNNTNNNAAAANNNTTTGTTTACTGCNNNTTGGNNTGATAACNNNTTNNGCTATTGANGGTAAAGCNNNNGTTTAGCTTCTAACAGTC
    CATTTACTTGGACAATCCNTTATCAANNNNNCCNNNAANNNNNNNNCNNNCNNNNNNNNGNTTGNNNNNNGNNNTTTTGTCNTTNNCNGCGTTTCCAGGTCTATG
    TTTTTCATATACCCCCNNGTATNNNTATAGAATGTNATNAANNGGCCTTTGTGCCTATNAACTTATNCAACTTTNNNCAACGGATCNNNTGGCNNNCGCATCGAT
    GAAGAACGCANCGAAATGCGATAAGTAATGTGAATTGNAGAATTCANTGAATNNNNNAANNNTTGAACGNNCCTTGCGCNNCTTGGTANTNNNNNNGGNNNNNNN
    NNNGNNNNNAAANNTGNNNNNNGGNNTTNGTNNNNNNNCCTGCNGNNNGNNNNNNNNNNNAANTAACCTNNNGNNNTTCTTCTGGNNTNNNNNGGNNNNNGTGNN
    NNNNTGTNNNNNTTANANNNNNNNNNNTNAANCNNTTGNNNANNCNGNNANNNNNNNNNNNNN

    Man sieht hier dass es ein Irrgang wäre, wenn man nur den Mittelbereich der Sequenz verwenden würde indem man vorne und hinten die schlechten Teile abschneidet wie es oft getan wird.
    Das Masking ist hier eine Pflicht!

    Weiter gehts mit BLAST und einer Lineage:
    Mit dieser Maskensequenz gehe ich nun wieder in BLAST, Taxon-ID: fungi, und zwar alles was "uncultured" ist gleich ausblenden, denn bei Cortinarius sind sehr viele uncultured dabei, die nur stören. Also weg damit. Man findet damit logischer Weise eine ganze Palette an Arten, die theoretisch in Frage kommen. Und zwar - ganz überraschend - mehr Hebeloma als Cortinarius. Genauer gesagt nur eine einziger Cortinarius der zugleich noch eine wahrscheinlich falsch bestimmte Hebeloma ist! Also NUR Hebelomas... ;)
    Hier das Ergebnis als so genannte Lineage:
    mush-12228.gif
    Überrascht? ;)
    Ich auch!
    Aber das heißt an dieser Stelle noch gar nichts. Bestimmte Ketten KÖNNEN Gattungsübergreifend gleich sein. Bei Hebeloma und Cortinarius ist das so.

    Schränkt man die suche auf Gattung Cortinarius ein passiert folgendes:
    mush-12229.gif

    Gleich als erster in der Liste taucht (hier zufällig) eine Telamonie auf, die in FN nicht gelistet ist.
    Der Schuppigzerrissene Gürtelfuß (Cortinarius incisus).
    Und dieser passt laut Beschreibung (nach der ich in der Literatur lange suchen musste) erstaunlich gut auf unseren Fund.
    Sollte das die Lösung sein?

    Manuelles Base-Calling über Einzelsequenzen:
    Eine Möglichkeit um weiter zu kommen ist das manuelles Base-Calling über Einzelsequenzen.
    Es gibt noch das Verfahren über das manuelle Base-Calling über eine Sequenzsammlung und Divergence-Map (was das ist erfahrt Ihr im nächsten Praxisbeispiel).
    Ich verwendete an dieser Stelle aber Einzelsequenzen, weil anhand der morpholigischen, mikroskopischen und DNA-Bruchstücke schon einigermaßen sicher war, dass es ein bestimmter Pilz, nämlich Cortinarius incisus oder eine nahe stehende Art ist UND weil ich ein Masking vorher machen musste.
    Ich suchte mir KU973875 als erste Sequenz aus für die manuelle Korrektur der schlechten Basenamplituden, alignete diese - und korrigierte die offensichtlich falschen Basen von hand:
    mush-12238.gif
    Dies wiederholte ich mit anderen Sequenzen die ich dieser Session hinzufügte so lange, bis keine Unklarheit mehr vorhanden war.
    Dass hier nach jeden Schritt ein Alignment gemacht werden muss versteht sich von selbst.
    Am Ende hatte ich folgende Palette von Sequenzen, die für einen finalen Basenvergleich für qusi-Eindeutigkeit sorgte:

    [font="Courier New"]KU973875 Cortinarius incisus Tunesien
    AY669656 Cortinarius incisus Deutschland
    GQ159899 Cortinarius pseudoduracinus Kolumbien
    KC581333 Cortinarius acutus Kanada
    HQ604677 Cortinarius junghuhnii Kanada
    HQ604674 Cortinarius acutus Kanada
    HQ604675 Cortinarius junghuhnii Kanada
    GQ159781 Cortinarius acutus Kanada
    FJ157001 Cortinarius acutovelatus Kanada
    KC842420 Cortinarius acutus Norwegen
    FJ039609 Cortinarius acutovelatus Kolumbien
    AY083175 Cortinarius acutovelatus Indien
    FJ717495 Cortinarius acutus Kolumbien
    AY669655 Cortinarius acutovelatus Deutschland
    FJ039695 Cortinarius laetus Kolumbien
    FJ039608 Cortinarius ceraceus Kolumbien
    FJ039692 Cortinarius acutus Kolumbien
    FJ039693 Cortinarius ceraceus Kolumbien
    HQ604679 Cortinarius acutus Kanada
    HQ604678 Cortinarius junghuhnii Kanada
    FJ039606 Cortinarius ceraceus Kolumbien
    FJ157002 Cortinarius acutus Kanada
    GQ159809 Cortinarius rigens Kanada
    AF325578 Cortinarius acutus USA

    Outgroup (für das gleich folgende Phylogramm):[font="Courier New"]
    KJ635244 Outgroup

    Das Ergebnis muss eine saubere Übereinstimmung der vorher "schlechten" Basen sein. Selbstverständlich darf man keine guten Basen dabei umbiegen.
    Nur die schlechten werden korrigiert. Und so sollte das Ergebnis dann aussehen (erste Zeile ist unser Fund):
    mush-12239.gif

    Phylogenetische Analyse

    Nach einem solchen Abgleich ist es normalerweise nicht mehr nötig weiter im Blast-Nirvana zu fischen.
    Es kann gleich eine phylogenetische Analyse mit bekannten Arten durchgeführt werden.
    Die roten Werte sind die so genannten "Bootstrap-Werte" - über die werde ich mal genauer berichten:
    mush-12240.gif
    Ganz klar - unser Fund ist zumindest mit den bekannten Sequenzen Cortinarius incisus.
    Nebenbei erkannt: Dass Cortinarius acutus und Cortinarius junghuhnii offensichtlich Phantome sind sollte nun klar sein. Hier verstecken sich mehrere Arten die noch nicht sauber getrennt sind oder teilweise zu einer Art zusammengefasst werden sollten.

    Ich musste einige Literatur wälzen um den Pilz endgültig zu bestätigen.
    Hier die Beschreibung nach Adalbert Ricken, in "Die Blätterpilze (Agaricaceae) (1915)":
    mush-12241.gif

    mush-12242.jpg

    Hier also nun viel Spaß mit diesem schönen Pilz - der Schuppigzerrissene Gürtelfuß (Cortinarius incisus):
    "Schuppig" und "zerrissen" - in der Tat... ;)
    Hier die ganz jungen Exemplare:
    mush-10752.jpg
    Etwas älter:
    mush-10753.jpg

    mush-10754.jpg

    Alt - schön aufgerissen:
    mush-10755.jpg

    mush-10756.jpg

    Praxisbeispiel 2:

    Ihr erinnert Euch vielleicht ebenso an diesen grandiosen Fund.

    Fundnummer: 2015-11-10-1453

    Fundort: ca. 550 müNN. ca. N50, O12, auf Rasen, bei Weide (Salix spec.)
    Fundzeit: 10.11.2015
    Wuchsform: büschelig
    Hutform: konvex bis abgeflacht, Mitte kaum vertieft, wellig uneben
    Huthaut: hellbraun mit Lilaton, seidig, radialfaserig
    Hygrophanität: nein
    Hutrand: saumartig, mit wenig bräunlichem Behang
    Lamellen: braun, mit Zwischenlamellen, weit entfernt stehend, mit Y-Gabeln
    Lamellenschneiden: ohne Besonderheiten
    Lamellen - Stielübergang: gerade angewachsen
    Stiel: weiß, längsfaserig, oben braun befasert, mit weißer Ringzone, voll
    Velum-Farbe: weiß
    Haarschleier-Farbe: braun
    Stielbasis: keulig verdickt
    Fleisch: creme mit Violettton

    Größe: Hutdurchmesser ca. 3-8 cm, Stiellänge ca. 6-9 cm, Stieldurchmesser ca. 20 mm
    Sporenpulverfarbe: nicht getestet
    Geruch: gut pilzig
    Geschmack: nicht probiert
    Exsikkat-Farben: Lamellen dunkelbraun, Huthaut graubraun, Stiel außen: beige, Stielfleisch hellbraun. Die Lilatöne sind komplett verschwunden.

    Ich nahm keinen Geschmack auf, ebenso konnte ich die Sporendaten nicht aufnehmen (da ich keinen Sporenabwurf angefertigt hatte), auch die makrochemischen Reaktionen nahm ich nicht auf.
    Schlüsselt man nach FN wird es schwer. Es ergeben sich verschiedene Wege. Zum Beispiel kommt man beim Weißvioletten Dickfuß (Cortinarius alboviolaceus) heraus, für diesen passt die Weide nicht.
    Der richtige Weg, den ich zwar unter anderen im Auge hatte, aber wirklich unsicher war ist dieser:
    Seite 762 > HS1 > Reifpilz ist es nicht > HS2 > HS4 > HS5 > HS6 > subgen. Telamonia p. 826 > ST1 > ST21 > ST46 > ST47 > ST51 > ST52 > ST53 > Key L > da Sackgasse: Key F > F1 > F2 > F4 > Cortinarius saturninus

    Doch auch hier bestand das Problem, dass es weitere Arten gibt die in FN gar nicht gelistet sind.
    Ich musste also eine Sequenzierung und Sequenzanalyse durchführen um dem wunderschönen Pilz auf die Schliche zu kommen.
    Die genomische DNA wurde aus getrockneten Fruchtkörpern extrahiert. Die Amplifikation der ITS-Region wurde mit dem ITS4 Primer durchgeführt. Die Nukleotid-Sequenzen für die Berechnung des Phylogramms wurden aus NCBI und Unite entnommen.
    Das Ergebnis: Glück gehabt! Es gibt eine deutliche Übereinstimmung mit einem potentiellen Pilz der schon mit FN geschlüsselt werden konnte - Cortinarius saturninus!
    Für die Analyse habe mal eine etwas weitere Arten-Bandbreite gewählt, da sieht man schön, wo der Pilz steht.
    Das folgende ML-Phylogramm zeigt die Positionierung des Pilzes (Die roten Werte sind die ML Bootstrap-Werte).
    mush-12235.gif

    Nun schaut Euch diesen extrem schönen Pilz genau an.
    Ich präsentiere: Den Blaufleischigen Wasserkopf (Cortinarius saturninus) - der bei mir endgültig das Cortinarius-Fieber auslöste:
    mush-10247.jpg


    mush-10248.jpg


    mush-10249.jpg


    mush-10250.jpg


    Ich hoffe Ihr hattet Spaß an meinen kleinen Bericht und Freue mich über Eure Kommentare.
    Beste Grüße
    Dieter


    Beim Firefox kann man aber z.B. das grundsätzliche Laden von Bildern nicht mehr so einfach ab- und einschalten.


    Doch, doch, das ist ein einziges Knopfdrückchen dass sicher jeder kennt der eine schlappe Internetverbindung hat:


    Und das ist der wichtigste Knopf eines Browsers überhaupt! ;) ;)


    (Gerade mal Cache gelöscht, und beide Beiträge von heute anklickt, beide komplett und gleichzeitig neu laden lassen, da kommen ca. 90 Sek zusammen bei mir zur Zeit.)


    Hmmm - also Cache löschen brauchst Du dazu überhaupt nicht. Drücke Strg+F5.
    Naja und 90 Sekunden - dann sind es halt bei Auflösung 800x600 = 45 Sekunden.
    Logisch - die Hälfte eben.


    Greets
    Dieter

    Hallo,
    danke für die Tipps...


    denn auch mit einer relativ guten DSL-Verbindung ist die Ladezeit schon beträchtlich (man lädt und macht inzwischen was anderes.)


    Nein - gerade mal getestet - schlappe 15 Sekunden bei Teil 2 des Berichtes mit momentan DL = 15,625MBit/s


    Aber naja - hab mir schon überlegt die Bilder 800 px breit/hoch zu machen.
    Aber mal ein paar Tipps dazu:
    - Auch ich habe verschiedene Rechner an verschiedenen Orten laufen. z.B. welche mit UMTS-Stick. An solchen Rechnern arbeitet man grundsätzlich anders - und zwar...
    - wer ein Limit (oder eine lahme Internetverbindung) hat, der hat doch sowieso "Bilder ausblenden" standardmäßig eingeschaltet - dann ist die ladezeit quasi null - es kommt ja nur der Text.
    - wer ein Limit (oder eine lahme Internetverbindung) hat und "Bilder ausblenden" ausgegeschaltet hat - der hat doch den Finger sowieso immer an der Escape-Taste und bricht das Bilder laden ab. So mache ich das gewöhnlich immer, auch bei Rechnern mit DSL. Will ich ein Bild sehen, kann ich es ja laden lassen. Und wil ich alle Bilder sehen drücke ich F5.
    - wer kein Limit und eine normale Internet-Verbindung hat dem ist es egal
    Aber mal sehen, vielleicht verkleine ich beim nächsten mal auf 800x600... ;)
    Beste Grüße
    Dieter

    [font="Arial"]Hallo Pilzfreunde,
    vielleicht erinnert Ihr Euch an diese Tour:
    https://www.pilzforum.eu/board…elplatz-tour-vom-feinsten

    [/font]
    [font="Arial"]Aus dieser Tour sind inzwischen die meisten Pilze bestimmt.
    Einer davon ist nun quasi auch bestimmt, aber nicht 100% sicher.
    Diesen wollte ich euch kurz zeigen:
    [/font]
    [font="Arial"]Fundnummer: 2015-09-21-1656
    [/font]
    [font="Arial"]Morphologische Daten:
    [/font]
    [font="Arial"]Fundort: ca. 550 müNN. ca. N50, O12, auf Rasen bei Vogel-Kirsche (Prunus avium)
    Fundzeit:
    21.09.2015
    Wuchsform: gesellig
    Hutform:
    ausgebreitet mit leichtem Buckel, wellig
    Huthaut: braun
    Hygrophanität: ja
    Hutrand: etwas eingerollt
    Lamellen: weiß, mit Zwischenlamellen, mit Y-Gabeln verkehrt herum
    Lamellenschneiden: normal
    Lamellen- Stielübergang:
    gerade angewachsen
    Stiel:
    cremegrau, brüchig, etwas braun befasert, hohl
    Stielbasis: sehr spitz zulaufend
    Fleisch: brüchig
    Größe: Hutdurchmesser ca. 2-4 cm, Stiellänge ca. 6-10 cm, Stieldurchmesser ca. 8 mm
    Sporenpulverfarbe: weiß
    Geruch: stark mehlig
    Geschmack: nicht getestet

    [/font]
    [font="Arial"]Mikroskopische Daten:
    [/font]
    [font="Arial"]Sporen:
    [font="Arial"]eindeutig amyloid[/font]
    (5.5) 5.7 - 6.2 (6.6) x (3.4) 3.7 - 4.3 (4.4) µm

    Q = (1.3) 1.4 - 1.6 (1.7) ; N = 31
    V = (34) 42 - 61 (62) µm ³
    Me = 5.9 x 4 µm ; Qe = 1.5 ; Ve = 51 µm ³

    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Schlüsselt man nach Gröger endet man wegen der Sporenmaße in einer Sackgasse.
    Bestimmt man jedoch nach Ludwig - dann ist das ein teilweise etwas zu groß geratener Heller Samtritterling (Dermoloma josserandii):

    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Was meint Ihr dazu?
    Beste Grüße
    Dieter

    [/font]

    Bericht vom 15.04.2017: Im Muschelkalk - Teil 2

    Liebe Pilz-Freunde,
    dies ist Teil 2 des Berichtes vom 15.04.2017.
    Teil 1 findet Ihr hier
    Und weiter geht's...

    Fundnummer: 2017-04-15-1154
    Matthias erklärte mir die Ziegelrote Kohlenkruste (Hypoxylon rubiginosum):
    mush-12037.jpg
    ☻

    mush-12038.jpg
    ☻

    mush-12039.jpg
    ☻

    Dieter machte einen einzigartigen "Fund" - große schwarze scheibenartige Pilze mit Loch in der Mitte... mehrere Dutzend Exemplare...
    Er hatte keine Ahnung um welche sonderbaren Pilze es sich handeln könnte... und rief Matthias um Hilfe wegen der Bestimmung...
    mush-12087.jpg
    ☻

    Matthias erkannte aber dass es sich wohl nicht um Pilze handelte. ;)
    Trotzdem hier ein Foto von den eigenartigen Objekten - vielleicht hat von Euch so was schon mal im Wald gefunden?
    mush-12086.jpg
    ☻

    Fundnummer: 2017-04-15-1254

    Ein Erstfund, hier am Rande eines Holzhäcksel-Lagerplatzes an alten Häckseln. Leider waren keine reifen Sporen auffindbar.

    Die Scheibenlorchel (Discina ancilis):
    mush-12040.jpg
    ☻

    mush-12041.jpg
    ☻

    mush-12042.jpg
    ☻

    mush-12043.jpg
    ☻

    mush-12044.jpg
    ☻

    mush-12045.jpg
    ☻

    mush-12046.jpg
    ☻

    Dieter war begeistert:
    mush-12088.jpg
    ☻

    Fundnummer: 2017-04-15-1303


    Unweit der Discina, an der selben Häcksel-Stelle tauchte eine wahnsinnig große Gruppe der Frühjahrslorchel auf. Über etliche Quadratmeter waren bestimmt 100 Exemplare in allen Größen und Altersstadien zu bewundern.

    Frühjahrslorchel (Gyromitra esculenta):
    mush-12047.jpg
    ☻

    mush-12048.jpg
    ☻

    mush-12049.jpg
    ☻

    mush-12050.jpg
    ☻

    mush-12051.jpg
    ☻

    mush-12052.jpg
    ☻

    mush-12053.jpg
    ☻

    mush-12054.jpg
    ☻

    mush-12055.jpg
    ☻

    mush-12056.jpg
    ☻

    Fundnummer: 2017-04-15-1318

    Auch das fand ich wieder mal interessant...
    Matthias meinte ich solle mal die Sporen anschauen was ich natürlich machte...

    Der Busch-Windröschen-Rost (Tranzschelia fusca):
    mush-12057.jpg
    ☻

    mush-12058.jpg
    ☻

    mush-12059.jpg
    ☻

    mush-12060.jpg
    ☻

    mush-12061.jpg
    ☻

    mush-12062.jpg
    ☻

    Das war's für heute....
    Wir freuen uns auf Eure Kommentare
    Beste Grüße
    Dieter & Matthias

    Bericht vom 15.04.2017: Im Muschelkalk - Teil 1

    Liebe Pilz-Freunde,
    an diesem Tag machten wir (ich und Matthias) uns das erste mal gemeinsam dieses Jahr auf den Weg.
    Das Wetter war zwar recht trocken, doch wir versuchten trotzdem schon mal unser Glück in einem Morchel / Lorchel / Verpel - Gebiet.
    In diesem Gebiet fanden wir zwar keine von denen, aber einiges anderes, dass wir Euch natürlich zeigen.
    In einem nahe gelegenen Gebiet mit Hackschnitzelplatz wurden wir dann aber fündig.

    Wegen der Menge müssen wir diesen Bericht diesmal auf 2 Teile aufteilen.
    Teil 2 findet Ihr hier

    Um alle Bilder zu sehen, ohne sie einzeln anklicken zu müssen könnt Ihr wie folgt vorgehen: Hier im Forum einloggen, ein Bild anklicken und den Haken in der Checkbox "Diese Einstellung merken" und "Speichern" klicken.

    Wir schreiben den Bericht wieder zusammen.
    Wie immer: Meine Texte sind schwarz, Matthias' Texte sind grün. ;)
    Meine Bilder sind mit einem schwarzen☻, Matthias' Bilder sind mit einem grünen☻gekennzeichnet.

    Fundnummer: 2017-04-15-0859

    Die kaffeebohnenartige Form dieser Art sieht man bei genauem Hinsehen auch schon deutlich mit bloßem Auge. An einigen Stellen an dem etwa 3cm starken Ast waren die Fruchtkörper fast ringförmig angeordnet, wie man es sonst von den Hexenringen der Großpilze kennt. Mikroskopisch ist die Art durch die Sporen gut festgelegt, aber durch die Härte der Fruchtkörper ziemlich nervig zu präparieren.

    Eschen-Spaltkohlenpilz (Hysterographium fraxini):
    mush-12007.jpg
    ☻

    mush-12008.jpg
    ☻

    mush-12009.jpg
    ☻

    mush-12010.jpg
    ☻

    mush-12011.jpg
    ☻

    mush-12012.jpg
    ☻

    mush-12013.jpg
    ☻

    mush-12014.jpg
    ☻

    mush-12015.jpg
    ☻

    mush-12016.jpg
    ☻

    mush-12017.jpg
    ☻

    mush-12018.jpg
    ☻

    mush-12019.jpg
    ☻

    Fundnummer: 2017-04-15-0922

    Diese Schönheit mit Knopfaugen knipsten wir auch kurz - die Grasglucke (Euthrix potatoria):
    mush-12020.jpg
    ☻

    mush-12021.jpg
    ☻

    Fundnummer: 2017-04-15-0925

    Vor Ort vermuteten wir schon richtig - was Matthias auch mikroskopisch bestätigte:
    Der Graublättrige Tintling (Coprinellus impatiens):
    mush-12023.jpg
    ☻

    mush-12022.jpg
    ☻

    mush-12024.jpg
    ☻

    mush-12025.jpg
    ☻

    Fundnummer: 2017-04-15-0959

    Die Art fanden wir an unserem ersten Ziel des Tages mit zwei Exemplaren, an einer anderen Stelle fanden wird dann etliche Exemplare, mit denen einige schöne Gruppenfotos möglich waren.

    Frühlings-Glockenschüppling (Pholiotina aporos):
    mush-12026.jpg
    ☻

    mush-12027.jpg
    ☻

    mush-12028.jpg
    ☻

    mush-12029.jpg
    ☻

    mush-12030.jpg
    ☻

    mush-12031.jpg
    ☻

    mush-12032.jpg
    ☻

    mush-12033.jpg
    ☻

    mush-12034.jpg
    ☻

    mush-12035.jpg
    ☻

    mush-12036.jpg
    ☻

    mush-12090.jpg
    ☻

    Weiter zum Teil 2

    [font="Arial"]Vielen Dank an alle,
    es war einfacher als gedacht - Matthias erkannte auf meinem Bild eine sich ablösende Sporenhülle.
    Damit war klar: Galerina. ;)

    Ich nahm die Lamellenelemente auf:

    Cheilos:

    ampullenförmig, manchmal mit Kopf, manchmal nur Hals ohne Kopf, eine mit Schleimkappe gefunden
    (21.1) 25 - 32.2 (35.1) x (5.6) 6.2 - 7.8 (8.1) µm
    Q = (3.4) 3.5 - 4.9 (5.2) ; N = 17
    Me = 28.7 x 7 µm ; Qe = 4.1

    Cheilo-Hälse:
    (1.2) 1.3 - 2.1 (2.2) µm
    N = 13
    Me = 1.7 µm

    Cheilo-Köpfe:
    (1.1) 1.9 - 3.1 (3.3) µm
    N = 22
    Me = 2.6 µm

    [/font]
    [font="Arial"]Basidien:
    2-sporig, mit Basalschnallen
    (18.8) 20 - 26.4 (27.1) x (6.7) 6.8 - 7.9 (8.1) µm
    Q = (2.5) 2.7 - 3.4 (3.5) ; N = 7
    Me = 22.7 x 7.4 µm ; Qe = 3.1

    Sterigmen:
    (3.6) 3.7 - 4.5 (4.8) µm
    N = 7
    Me = 4.1 µm

    Basidolen:
    (15.6) 16.9 - 23.1 (23.2) x (5.6) 6.1 - 7 (7.5) µm
    Q = (2.7) 2.8 - 3.3 (3.5) ; N = 9
    Me = 20 x 6.6 µm ; Qe = 3

    [/font]
    [font="Arial"]Nach FN dann wirklich einfach zu schlüsseln:
    1 > Key A p. 887 > 1 > 3 > 4 > 5 > Flaschenzystidenhäubling (Galerina ampullaceocystis)

    Für mich ein toller Erstfund ;)
    Beste Grüße
    Dieter
    [/font]

    [font="Arial"]Hallo Pilzfreunde,
    Ein sehr schöner winziger, eigenartiger Pilz fand sich am 12.06.2016...
    Hier weiß ich nicht recht weiter...

    Fundnummer: 2016-06-12-1441
    [/font]
    [font="Arial"]Morphologische Daten:
    [/font]
    [font="Arial"]Fundort: ca. 550 müNN. ca. N50, O12, an Totholz Birke im Mischwald
    Fundzeit: 12.06.2016
    Wuchsform: einzeln
    Hutform:
    spitzkegelig mit starkem Buckel
    Huthaut: Zentrum rotbraun, nach außen heller werdend, glatt, leicht schmierig, Lamellen durchscheinend
    Hygrophanität: ja
    Hutrand: ohne Besonderheiten
    Lamellen: gelbbraun, mit Zwischenlamellen
    Lamellenschneiden: heller als Lamellen
    Lamellen-Stielübergang:
    ausgebuchtet angewachsen
    Stiel: orangebraun, längsfaserig, fest, hohl, mit tiefer weißer Ringzone, über der Ringzone etwas weiß befasert, unter der Ringzone weiß befasert
    Stielbasis:
    verdickt
    Fleisch: orangebraun im Stiel, rotbraun im Hut
    Größe: Hutdurchmesser ca. 0,8 cm, Stiellänge 1,5 cm, Stieldurchmesser ca. 1,5 mm
    Sporenpulverfarbe: nicht getestet
    Geruch: neutral
    Geschmack: nicht probiert
    Exsikkat-Farben: Hut mittelbraun, Lamellen und Stiel rötlich braun, nicht schwärzlich

    [/font]
    [font="Arial"]Mikrodaten:
    Sporen:
    dickwandig, spindelig bis ellipsoid, leicht warzig
    (8.4) 9.3 - 10.8 (11) x (4.4) 5.1 - 5.6 (5.9) µm
    Q = (1.7) 1.8 - 2 (2.1) ; N = 36
    V = (94) 128 - 174 (200) µm ³
    Me = 10.1 x 5.3 µm ; Qe = 1.9 ; Ve = 150 µm ³


    [/font]
    [font="Arial"]Es könnte sich um eine Cortinarius handeln - auch diese können ja schon mal an Holz vorkommen.
    Also schlüsselte ich nach FN wie folgt (alle Sackgassen habe ich bereits entfernt):

    [/font]
    [font="Arial"]Seite 762 > 1 > 2 > 4 > 5 > 6 > Telamonia. p. 826 > 1 > 2 > 6 > 7 > 8 > Key O, sect. Incrustati etc. p. 873 > 1 > 4 > 8 > 9 > 10 > Cortinarius lamoureae

    Leider finde ich kein Bild von Cortinarius lamoureae. Kann jemand weiter helfen?

    Cortinarius lamoureae
    evtl.:

    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]
    [/font]
    [font="Arial"]Vielleicht ist es gar kein Schleierling - ich bin für jeden Hinweis dankbar.
    Tubaria schloss ich wegen Sporenform und Sporen-Textur aus.
    Beste Grüße
    Dieter

    [/font]

    Hi Pablo,
    danke, auf den letzten Bild unten rechts sehe ich aber auch Cheilos ohne auswüchse.
    Vielleicht hatte ich zufällig en Lamellenstück ohne diese.
    Ich werde hier nochmal auf die Suche gehen - un dauch die Pleuros und Velumzellen aufnehmen.
    Mal sehen was ich raus finde.
    Auf jeden Fall hatte mein Fund nicht das röten beim trocknen.
    Beste Grüße
    Dieter

    Hey Pablo,


    Hast du einen Ludwig I zur Hand? Oder Persoonia 13(3): 325?


    Aber logisch - beides ;)


    Da erwähnt Ludwig eine von Else Vellinga in der Zeitschrift vorgestellte Kollektion von Hujsman aus dem seminuda - Umfeld, nur eben mit Cheilos und etwas größeren Sporen (die lustigerweise nach Ludwigs Notiz ziemlich gut zu deinem Fund passen können).


    Ach du dickes Ei! Ja, aber asbsoult - die Mikrozeichnung auf Seite 322 von Persoonia 13(3) stimmt gut mit meinen Pilz überein.
    Lecko Mio! Na das ding wird sequenziert - das ist ja wohl logisch.
    Ich gebe ihm vorerst den Arbeitsnamen Cystolepiota seminuda var. vellinga ;)
    Ich sage Euch bescheid was ich raus finde...
    Greets
    Dieter