Beiträge von Helmut

    Hallo Corinne,

    ich finde den immer nur an sehr nährstoffarmen Stellen auf sauren Sandböden, und die sind in den letzten Jahrzehnten deutlich zurückgegangen (zumindest im Bayerischen Wald).

    Gruß Helmut

    Ach ja, hier noch die Mikro-Daten zu I. cf. gracilentum 180829_12:

    Sporen (9,3) 10,8-13,7 x 5,5-6,7 µm, Av. 11,9 x 5,86 µm, Q = 1,7-2,3, QAv = 2,0, Cheilozystiden 21-46 x 7-11 µm, Av. 35,1 x 9,4 µm.

    Die Sporenbreite ist dabei für mich noch der größte Widerspruch gegen I. gracilentum (sollte bei 6,0-7,7, Av. 6,5 µm liegen!).

    Hier der letzte Teil der Serie: Es geht um eine Art aus dem alpinen Bereich, die ich bisher 5x gefunden habe, von 4 davon habe ich Herbarbelege. Eine stammt von saurem Boden, die anderen wuchsen über Kalk. Makroskopisch ähneln sie den Funden von I. praetermissum, ihr Sporen-Quotient liegt aber nur bei 1,95 bis 2,0 (1x 1,87) und die Sporenbreite ist mit einem Av. von 5,86-6,0 µm zu groß. Der Sporenquotient meiner Unbestimmbaren würde gut zu I. calamistratum s. str. (Neotypus) passen, deren Sporenbreite soll aber nur 4,6-5,6 µm (Av. 5,1 µm) liegen und der Hut deutlich struppiger, sparriger sein. I. subhirsutum (Komplex) mit einem Sporenquotienten um 1,6 ist mir bisher noch gar nicht untergekommen. Von den Mikro-Werten her liegen die Funde am Nähesten bei I. gracilentum, dafür scheinen sie aber makroskopisch nicht zu passen und die Cheilozystiden sind nicht so verbogen-gekrümmt wie in Teil III zu sehen. Allerdings habe ich bisher nur diesen einen m. E. sicheren Fund von I. gracilentum, keine ITS-Sequenzen und von daher nicht ausreichend Erfahrung, um die Variabilität dieser Art beurteilen zu können. Wenn es nicht noch eine unbekannte ähnliche Art gibt, dürfte es sich wohl doch um I. gracilentum handeln. Ich lege sie in meinem Archiv erstmal unter I. cf. gracilentum ab.

    Hier Standort-Fotos dieser Art(en) im Überblick:


    Die Aufsammlung aus 2018 (180829_12) erinnert auch makroskopisch an I. gracilentum, die bringe ich hier noch im Detail:

    Studio-Aufnahme von Inosperma cf. gracilentum 180829_12


    Cheilozystiden von Inosperma cf. gracilentum 180829_12


    Sporen von Inosperma cf. gracilentum 180829_12


    In meiner Sammlung fehlen mir bisher leider noch Nachweise von I. calamistratum s. str. und I. subhirsutum Agg.

    Gruß Helmut

    Weiter geht es mit einem Fund, der mir am 05.10.1991 im Murnauer Moos gelang, bei einer Exkursion mit Alfred Einhellinger. Es war ein winziger Einzelfruchtkörper, der zu keiner der in Esteve-Raventos et al. 2024 beschriebenen Arten passt. Hut 11 mm breit, 7 mm hoch, mäßig faserschuppig, auch in der Hutmitte fast anliegend, Stiel 50 x 1,5 mm, Basis bis 2 mm, Sporen (8,7) 9,0-12,3 (13,8) x 5,0-6,5 (7,5) µm, im Schnitt 10,5 x 5,7 µm, Q=1,6-2,0, im Schnitt 1,83, Cheilozystiden (21) 25-50 (60) x 8-12 (14) µm, Av. 40,0 x 10,3 mm, Q = 2,3-4,8 (5,4), QAv = 3,9.

    Es unterscheiden sich:

    • I. gracilentum durch alpines Vorkommen und signifikant größere und v. a. breitere Sporen (auch wenn der Quotient wieder passt) und kürzere Zystiden
    • I. praetermissum durch deutlich längere Sporen und einem höheren Sporen-Quotienten sowie i. d. R. größere Frk.
    • I. calamistratum s. str. durch stärker sparrig-schuppigen Hut, geringere Sporenbreite mit höherem Quotienten und kürzere Zystiden
    • I. subhirsutum (Komplex) durch deutlich breitere Sporen mit einem Q-Wert um 1,6

    Um weiterzukommen, wird wohl die ITS-Analyse unabdingbar sein.


    Inosperma 911005 (calamistratum-Gruppe)


    Inosperma 911005 Cheilozystiden


    Inosperma 911005 Sporen


    Gruß Helmut

    Servus,

    leider nur eine Kollektion habe ich, die ich Inosperma gracilentum E. Larss. & Esteve-Rav. 2024 zugeordnet habe. Sie wuchs alpin über Kalk und fiel auf durch ihre Winzigkeit (Hut bis 15 mm), eine faserig-schuppige (fast sparrige) Hutmitte mit zum Rand hin fast glatt werdende Hutoberfläche und nur bis 2-3 mm dicke Stiele (letzteres kann aber auch bei I. praetermissum mal vorkommen). Mikroskopisch signifikant ist die Sporenbreite von 6,0-7,3 µm (im Schnitt 6,6 µm), was die deutlich abgrenzt zu I. praetermissum (um 5-6 µm, Av. 5,3 µm). Die einzige Abweichung meiner Aufsammlung war eine deutlich längere durchschnittliche Sporenlänge (13,4 statt 12,1 µm) bei allerdings ähnlichem "von-bis-Wert", und in der Konsequenz ein höherer Quotient (Av. 2,0). Allerdings wird bei Esteve-Rav. et al. 2024 im Text zu I. subhirsutum für I. gracilentum ein Quotienten-Schnitt von "1,8-2,0" angegeben, was wieder passt. Ursprünglich hatte ich überlegt, deswegen meine Kollektion als "cf. gracilentum" zu bezeichnen, aber nachdem Raphael dankenswerterweise unter meinem Beitrag II auch die Erkenntnis geäußert hat, dass der Q-Wert "hier weniger verlässlich zu sein" scheint, lehne ich mich mal aus dem Fenster und lege meinen Fund als I. gracilentum ab (begründete Einsprüche willkommen). Was noch auffiel: Die Cheilozystiden waren oft "gekniet", unregelmäßig, verbogen. Das will ich aber aus der Erfahrung heraus im extremen alpinen Bereich nicht überbewerten.

    Standort-Foto Inosperma gracilentum vom 19.08.2016


    Cheilozystiden I. gracilentum, oft unregelmäßig


    Sporen von I. gracilentum, recht variabel, mit der Theorie, dass die durchschnittliche Länge und der Q-Wert davon abhängen, wie viele länglichere oder auch kürzere Sporen produziert werden, während die Sporenbreite recht konstant zu sein scheint.


    Gruß Helmut

    Danke Raphael für die Ausführungen, die eine schöne Überleitung sind zu "Teil III", da habe ich noch eine I. gracilentum im Angebot mit genau dieser Erkenntnis, dass die Sporenbreite hier der wichtigere Wert ist als der Quotient. Allerdings habe ich noch einige Kollektionen, die nirgends so richtig reinpassen, die kommen auch noch in den nächsten Tagen.

    Gruß Helmut

    Hier die zweite Art aus der Calamistratum-Gruppe, die nach Esteve-Raventos et al. 2024 offenbar klar zu bestimmen war: Inosperma pratermissum (P. Karst.) Esteve-Rav., E. Larss. Pancorbo 2024. "Leitmerkmale" waren hier alpines Habitat und ein Sporenquotient um 2,2. Die Hutstruktur ist faserig-schuppig, manchmal auch in der Mitte glatt und felderig aufbrechend ("mosaikartig"). Insgesamt drei meiner Kollektionen sind dieser Art zuzuordnen: Zwei aus dem Jahr 2018 aus den Nördlichen Kalkalpen (eine deutsche und eine österreichische) und eine aus 2015, gefunden im Stubai auf saurem Boden. Die Kollektion vom 16.08.2018 stelle ich hier vor.
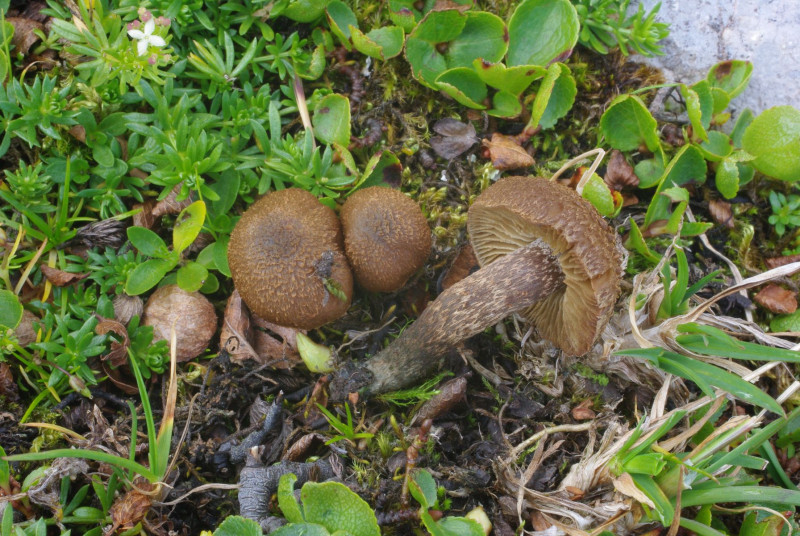
    Inosperma praetermissum, Salzburger Nordalpen 2018, Standortfoto
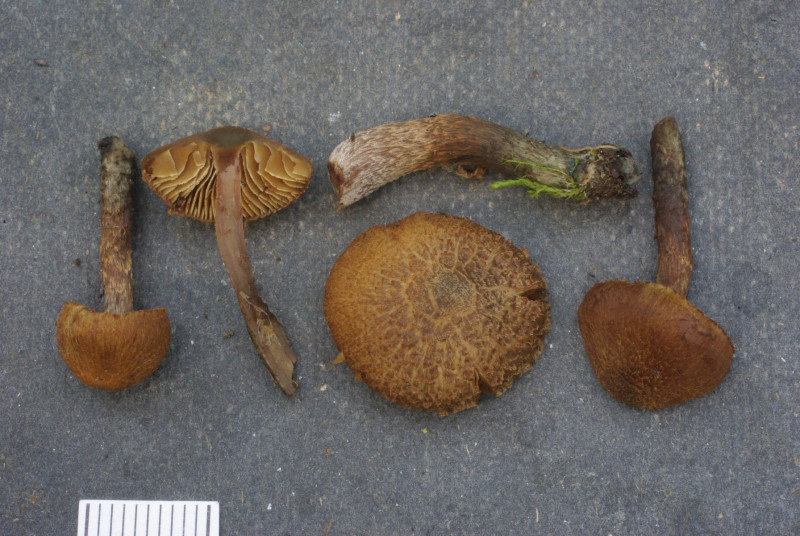

    Inosperma praetermissum, Studioaufnahme der selben Kollektion
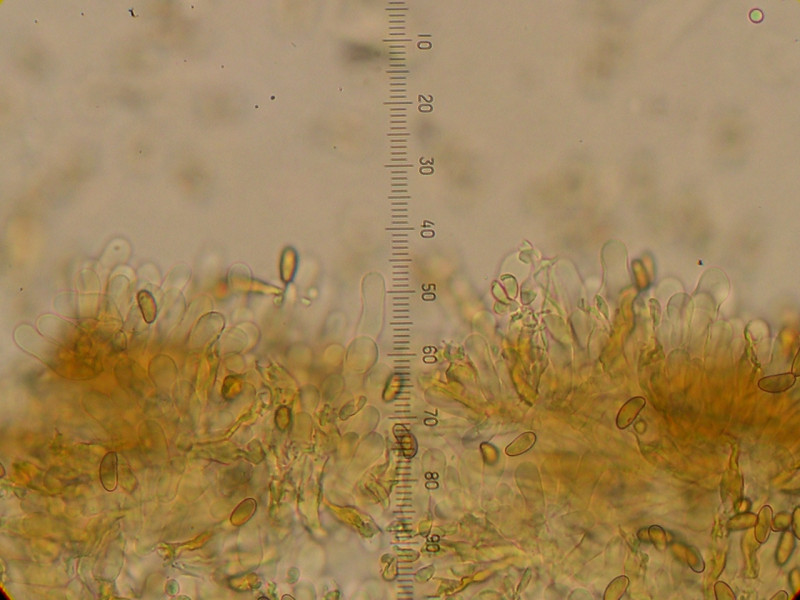

    Inosperma praetermissum: Cheilozystiden, Lamellenschneide nicht so dicht gepackt wie bei I. neohirsutum und mit Basidien und Basidiolen dazwischen, die leicht mal für Zystiden gehalten werden können
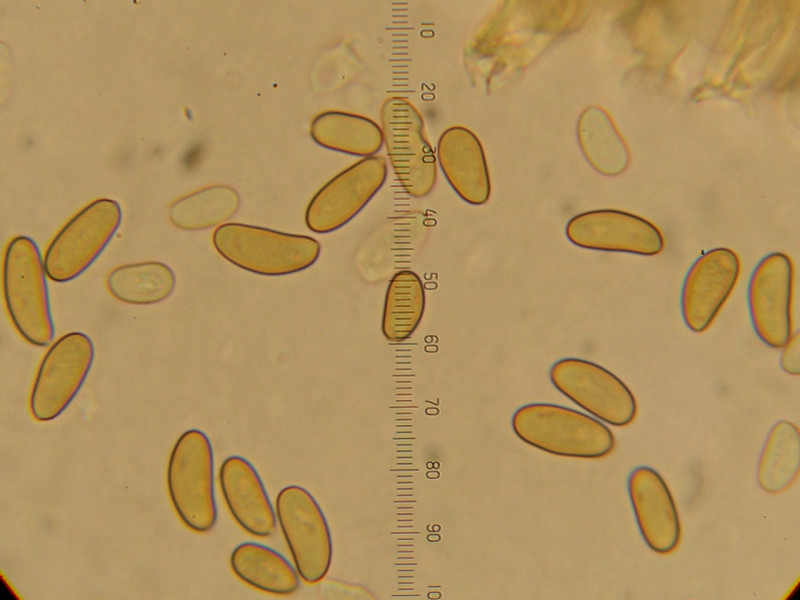

    Inosperma praetermissum mit sehr schlanken Sporen: (8,8) 9,0-14,0 x 4,8-6,0 (6,5) µm, Av. 11,8 x 5,4 µm, Q=(1,7) 1,9-2,6 (2,7), Av. 2,19. Eine Aufsammlung aus dem sauren Stubai hat sehr ähnliche Werte, eine weitere aus dem (kalkhaltigen) Karwendel ebenfalls, lediglich mit leicht abweichenden Durchschnittswerten (12,4 x 5,7 µm).
    Liebe Risspilz-Enthusiasten (die soll's immer noch geben),

    Esteve-Raventos et al. haben 2024 die Calamistratum-Gruppe und die Geraniodorum-Gruppe (Sektion Inosperma, Gattung Inosperma) bearbeitet. Darin sind 5 Arten aus der Calamistratum-Gruppe unterschieden. In meinem Fundus habe ich 11 Exsikkate mit Fotos (und eine Kollektion nur mit Foto), die als "Inocybe calamistrata" (oder als I. subhirsuta) abgelegt waren. Die habe ich jetzt alle nochmal beackert und nach dieser neuen Arbeit versucht zu bestimmen. Zwei Kollektionen (2023 und 2024) aus verschiedenen Teilen des Bayerischen Waldes, jeweils in der Nähe eines Baches, Mischforste über saurem Boden, waren äußerst sparrig schuppig mit breitbasigen pyramiden-artigen Schuppen und einem Sporenquotienten um 1,8. Die habe ich deshalb (wie ich meine recht klar) als Inosperma neohirsutum Esteve-Rav., Pancorbo & E. Larss. 2024 bestimmt. Hier die Fotos und Daten des neueren Fundes vom September 2024:

    Standort-Foto Inosperma neohirsutum 12.09.2024

    Studioaufnahme der selben Kollektion

    Cheilozystiden dicht gedrängt (sterile L.-Schneide)

    Sporen: (8,5) 9,2-10,8 (12,0) x 5,3-6,0 (7,0) µm, Av. 9,86 x 5,56 µm, Q=1,6-2,0, Av. 1,8

    Servus Raphael,

    die Telamonie mit dem gelben Velum finde ich interessant! Hast Du dazu genaue Sporenwerte? Da hatte ich letztes Jahr auch eine alpine Kollektion (allerdings von saurem Boden), die ich als T. saniosopygmaeum identifiziert hatte. Allerdings ist die nicht sequenziert. Folgende Notizen hatte ich zum Bestimmungsweg gemacht:
    "Der frisch gelbe Hutsaum und die gebe Stielbefaserung führen zu C. saniosus / aureomarginatus. In Armada et al. 2023 „Champignons de la zone alpine“ finden sich dann mehrere Arten aus der Sektion Saniosi, dem darin enthaltenen Schlüssel nach handelt es sich bei der hier vorgestellten Kollektion um C. saniosopygmaeus. Lediglich die Sporen sind nur bei ganz wenigen extremen Sporen so breit wie dort und wie in der Originalbeschreibung angegeben (bis 7 (7,5) µm), aber die anderen Arten haben noch schmalere Sporen mit Ausnahme von C. subsaniosus, die aber insgesamt kürzere Sporen hat. Konkrete Durchschnittswerte und Angaben zum Sporen-Quotienten könnten weiterhelfen, fehlen aber leider in der Literatur.

    Unterschiede:

    • C. gentilissimus ist eine nordamerikanische Art mit manchmal bläulicher Stielspitze und schmaleren Sporen
    • C. aureovelatus mit ebenso schmalen Sporen wird als Synonym zu C. gentilissimus vermutet
    • C. subsaniosus hat braune bis rötlichbraune Lamellen und kürzere Sporen von 7,5-10 (10,5) µm Länge (wohl unter 10 µm im Schnitt) und wächst normalerweise auf sandigem Boden bei Salix, nicht alpin
    • C. saniosus hat ebenfalls kürzere Sporen, im alpinen Bereich sollte sie weitgehend fehlen (allerdings mit dem Synonym C. chrysomallus nachgewiesen)
    • C. paludosaniosus hat schmalere, schlankere Sporen"

    Gruß Helmut


    pilzforum.eu/attachment/594385/


    Ui, I. undatolacera kannte ich noch gar nicht! Teilweise bekomme ich gar nicht mehr alle neuen Risspilz-Arten mit, die in den letzten Jahren ständig publiziert werden. Danke für's Mitnehmen, Raphael!

    Wie immer schöne Doku, Raphael!

    Alpine Mallocyben (und viele andere Gattungen) hätte ich auch noch etliche zum Sequenzieren, da beneide ich Dich ein wenig um diese Möglichkeit! Wie es der Zufall will war ich auch am 17./18. Juli auf einer Hütten-Übernachtung in knapp 2200 m. Da standen zwar die Pilze "eigentlich" nicht im Mittelpunkt, aber wenn da welche am Wegrand stehen, müssen die Mit-Wanderer halt ein wenig warten. Ab 2300 m aufwärts und unten im Fichtenwald gab es a bissl was, dazwischen nix. Ich will die nächsten Tage zumindest die wenigen alpinen Funde auch mal vorstellen.

    Gruß Helmut

    Liebe Forumisten,

    ende Juni wurde ich über den Giftnotruf kontaktiert, weil mal wieder ein Kleinkind an einem "Beet-Pilz" genascht hatte (zumindest in den Mund gesteckt). Die zugesandten Fotos zeigten ein großes gold-orangenes Samthäubchen, das ich noch nie gesehen hatte. Es konnte sich nur um Conocybe aurea handeln. Kurz darauf, Anfang Juli, fand ein regelmäßiger Teilnehmer unseres Pilzstammtisches die selbe Art, auch in einem Beet in seinem Garten und brachte einen Beleg mit zum Mikroskopieren. Es passte alles bis auf die Sporengröße. Die war bei dieser Kollektion größer als in allen anderen mirzur Verfügung stehenden Literaturquellen: 10,5-14,0 x 7,2-8,5 µm!

    Funga Nordica nennt 10-12,5 x 6-7 µm, Moser (1983) 9-13 x 6-7 µm, usw. Lediglich die Angaben bei Ludwig (Pilzkompendium) passen ins Bild: (8,5) 9,5-13,5 (14) x 6-9,5 (10) µm.

    Die von mir beobachteten Basidien waren 4-sporig, 2-sporige habe ich keine gesehen (könnten aber vorhanden gewesen sein).

    Die Art scheint recht selten zu sein und ist in den meisten "Pilz-Bilderbüchern" nicht enthalten. In Pilze-Deutschland.de finden sich bisher 7 Nachweise für Bayern (jetzt sind es 7 :cool: ).

    Anbei noch Fotos von der betroffenen Mutter und von dem Pilzfreund.


    Cheilozystiden und Sporen x400 (5 Teilstriche entsprechen 10 µm)

    Gruß Helmut

    Guten Morgen,

    diesmal ein (für mich) schwieriger Kandidat aus der Schlauchpilz-Ecke. Mangels Literatur und Erfahrung wäre ich für Tips dankbar.

    Die leuchtend gelben, eng anliegenden und nur kurz gestielten konvexen "Becherchen" fruktufizierten auf Fichtenzapfen, die in einem kleinen Bachlauf in einem kühlen Tal auf über 500 m lagen (saurer, armer Nadelforst). Sie sind etwa 2-4 mm breit. Die Sporen messen 15-18 x 4,5-5,5 µm, im Schnitt 16,3 x 5,2 µm, Q=2,7-3,6, im Schnitt 3,15.

    Gruß Helmut


    Frisch in Wasser


    Frisch in Baumwollblau-Milchsäure

    Servus,

    für Galerina sind mir die Lamellen viel zu dunkel. Wie braun war denn das Sporenpulver? Rostbraun, tabakbraun oder dunkelbraun (mit Tendenz Richtung schwarzbraun oder mit violettlicher Nuance)? Gab es Hymenialzystiden? Meine Vermutung geht eher Richtung Deconica/Psilocybe, Panaeolus oder evt. Psathyrella.

    Gruß Helmut

    Servus,

    einen Galerina-Uralt-Fund habe ich noch: Galerina ampullaceocystis (Flaschenhals-Häubling) vom 28.05.1987. Die Bestimmung nach FN war eindeutig! Bauchige Zystiden mit sehr dünnem Hals und meist sehr kleinem Köpfchen, manchmal auch ohne Köpfchen, und große, praktisch glatte Sporen, sowie Vorkommen auf Holzresten im Boden in einem Kiefern-Fichtenforst auf saurem Sandboden. Meine Messungen: Sporen 9,0-10,2-11,5 (13,5) x 5,5-6,0-7,0 (8,0) µm, Q=1,6-1,7-1,9. Die Köpfchen der Zystiden hatte ich zunächst bis 5 µm gemessen, bei der Nachkontrolle bemerkte ich dann, dass ich offenbar die öfter vorkommenden Schleimkappen mitgemessen hatte, ohne diese Kappen komme ich auf 1,5-3,5 µm.

    Gibt's vielleicht auch hier wieder phylogenetische Analysen, die die eindeutige Bestimmung in Frage stellen? Für Widerspruch oder Bestätigung bin ich wie immer dankbar.

    Gruß Helmut


    Servus mitnand,

    dann mach ich mal weiter mit den Häublingen. Eine damals nicht korrekt bestimmte Kollektion aus 1988 hielt ich für G. stylifera, von der ich schon mehrere Aufsammlungen hatte. Die Bestimmung in Funga Nordica als G. sideroides (Syn. G. stylifera) war aufgrund kopfiger Zystiden und kleiner Sporen (6-7,5(8) x 4-4,7 µm, Av. 6,7 x 4,2 µm) "a g'mahde Wies'n". Also simpel und klar - für Nicht-Bayern ;) . Aber dann wollte ich die Verbreitung wissen und habe in Pilze-Deutschland nachgeschaut. Das hätte ich nicht tun sollen! Denn da (und nicht nur da) gibt es neben G. sideroides (Bull.) Kuehner 1935 noch G. sideroides var. stylifera (G. F. Atk.) Krieglst. 1991. Es gelang mir aber nicht, den Unterschied zwischen den beiden Taxa zu eruieren. Kann mir hier auch wer weiterhelfen?

    Gruß Helmut


    Danke Raphael und Hias!

    In der Funga Nordica steht das aber nicht so und die hat als Schlüsselmerkmal schlankere Sporen bei hybrida ("narrowly amygdaloid", für mairei / tibiicystis nur "amygdaloid"). Das kann ich bei meinen Kollektionen nicht nachvollziehen.

    In Watling & Gregory 1993 (British Fungus Flora), mit der ich früher meine Galerinen bestimmt habe, steht hybrida gar nicht drin. Ludwig führt beide als Synonym. Seine Sporen sind im Schnitt auch schmaler, die Stiele haben keine Velumspuren und scheinen eher zu mairei zu gehören.

    Welche Literatur verwendet Ihr zum Bestimmen?

    Gruß Helmut

    Servus Raphael,

    ja, Basidien 4-sporig (2-sporige habe ich nicht gesehen), und auch kopfige Kaulozystiden hat der Pilz, aber nur wenige (bei der mairei-Kollektion waren die sehr zahlreich).

    In der Funga Nordica steht, G. hybrida habe einen fein bereiften ("minutely pruinose") Stiel ohne Velumreste ("veil absent"), identisch zu G. mairei (bzw. "tibiicystis").

    Gruß Helmut


    4-sporiges Musterbeispiel


    Eine der wenigen Stellen am Stiel mit kopfigen Kaulozystiden (in Kongorot-Ammoniak)

    Servus,

    nach der Galerina mairei ("tibiicystis ss. auct.") vom letzten Mal habe ich eine weitere Kollektion überprüft, die mit dem Namen G. tibiicystis in meinem Herbar lag. Sie stammt vom August 1987 und wuchs am Ammersee im Sphagnum. Die hat zwar auch tibiiforme Zystiden, aber den Stielen fehlt die feine Bereifung, dafür haben sie lockere weißliche Velumfasern und die Sporen waren rauer warzig, aber ähnlich groß (9-10,5 x 5,5-6,2 µm, im Schnitt 9,8 x 5,8 µm, Q 1,68). Schnallen waren vorhanden (aber nicht überall). Kann das trotzdem auch G. mairei sein?

    Gruß Helmut


    Dia-Scan


    Cheilozystiden


    Sporen

    Danke Raphael für die interessanten Ausführungen! Da waren aber neben der Sporenbreite auch noch die Dextroinität der Sporen. Deshalb habe ich noch was ausprobiert: Zuvor hatte ich ein kleines Lamellenstückchen des Exsikkats erst mit KOH eingeweicht (danach wieder abgezogen) und dann erst Melzers drauf. Jetzt habe ich es (lange!) direkt in Melzers eingelegt, obwohl mir klar war, dass das nicht optimal ist. So war's auch: Das Präparat bleibt fest und quillt nicht auf, Zystiden etc. sind nicht beurteilbar. Vorteil: Die Sporen reagieren doch dextrinoid (nicht besonders heftig, aber immerhin). Es scheint, dass sich das KOH an der Sporenoberfläche anlagert und sich nicht mehr ganz auswaschen lässt.

    Spaßeshalber habe ich nochmal 20 Sporen aus diesem Präparat vermessen (von einem anderen größeren Frk.), die Messbreite war wieder ähnlich, die Averages aber bei 9,8 x 6,0 µm. Da scheint also tatsächlich eine gewisse Variabilität aufzutreten.

    Ich werde den Fund jetzt unter G. mairei ablegen.

    Gruß

    Helmut

    Servus Christoph,

    die Sporen sollten bei tibiicystis dextrinoid sein, in der Breite im Schnitt über 6 µm und stärker ornamentiert. Ich muss aber zugeben, dass ich in dieser Gattung nicht gar so viel Erfahrung habe, um eine evt. Variabilität bei diesen Merkmalen sicher abschätzen zu können.

    Gruß Helmut